
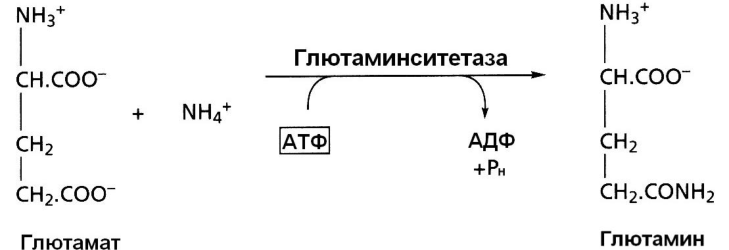
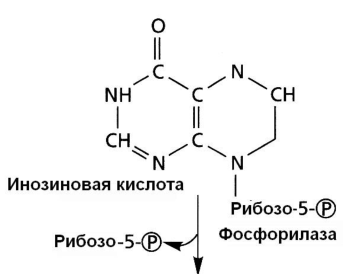
Глютамин затем включается в серию реакций с рибозо-5фосфатом, глицином и аспартатом для получения инозиновой кислоты, которая содержит пуриновое ядро. Серию реакций можно представить так:
8АТФ
2 Глютамин+Глицин+Аспартат

Инозиновая кислота+Фумарат
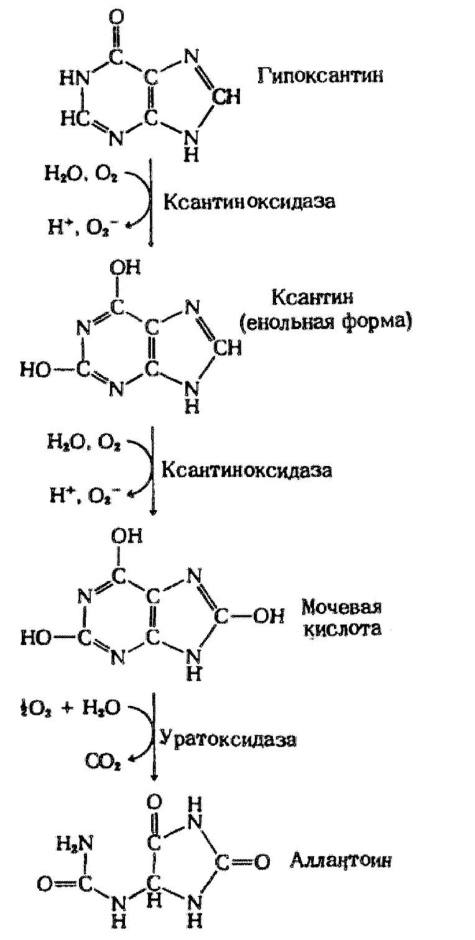
Рибоза-5-фосфатный остаток затем удаляется, образуя гипоксантин. При действии на него ксантиноксидазы, которая опосредует оксидацию, получают ксантин и затем мочевую кислоту (рис. 10.9). У приматов и птиц конечным продуктом является мочевая кислота, у большенства млекопитающих – аллантоин.
Отрыв двух молей аммиака происходит при затратах шести молей АТФ, кроме того два моля глютамата, один моль глицина и один моль аспартата расходуется, при этом производится один моль фумарата.
Эффективность, с которой используются питательные вещества как источники энергии, представлены в таблице 10.1.
Таблица 10.1 – Энергетическая ценность питательных веществ как источников АТФ.
| Вещества | ∆G(кДж/моль) | МолейАТФ на моль вещества | Молей АТФ/100 г вещества | Теплота от сго- рания моля АТФ (кДж) |
|---|---|---|---|---|
| Глюкоза | 2870 | 38 | 21,2(4) | 75,5 |
| Пропионовая кислота | 1528 | 17 | 22,9(3) | 89,9 |
| Уксусная кислота | 874 | 10 | 16,7(5) | 87,4 |
| Масляная кислота | 2184 | 26 | 38,5(2) | 84,0 |
| Аспарагиновая кислота | 1568 | 15 | 11,4(6) | 104,5 |
| Трипальмитин | 32025 | 409 | 50,7(1) | 78,3 |
Примечание: затраты на получение моля АТФ здесь взяты 86,3 МДж, вообще же принято считать 85,4 МДж.
10.7. Глюконеогенез
Если получаемое с пищей количество углеводов недостаточно, необходимая концентрация глюкозы в крови может поддерживаться некоторое время за счет расщепления гликогена в печени. Если истощены и эти запасы, в печени запускается синтез глюкозы de novo - глюконеогенез. Наряду с печенью высокой глюконеогенезной активностью обладают также клетки почечных канальцев. Исходными соединениями в глюконеогенезе являются аминокислоты мышечной ткани. При длительном голодании это приводит к массивному распаду мышечного белка. Другим важным исходным веществом для синтеза глюкозы служит лактат, образующийся в эритроцитах и мышечной ткани при недостатке О2 , а также глицерин, образующийся при расщеплении жиров. Жирные кислоты не могут трансформироваться в глюкозу в организме животных. В организме коров за счет глюконеогенеза образуется до 3- 4 кг глюкозы в сутки. Наиболее важными источниками глюкозы у жвачных являются пропионат, глицерол и аминокислоты.
Многие реакции глюконеогенеза катализируются теми же ферментами, что и процессы гликолиза. Некоторые ферменты специфичны для глюконеогенеза и синтезируются только по мере необходимости под воздействием гормонов кортизола и глюкагона. На схеме представлена только эта группа ферментов (рис.10.10). В то время как гликолиз протекает в цитоплазме, глюконеогенез происходит также в митохондриях и эндоплазматическом ретикулуме .
Первые стадии реакционной цепи протекают в митохондриях. Для перевода пирувата непосредственно в фосфоенолпируват (ФЕП) недостаточно энергии расщепления АТФ. Пируват, образующийся из лактата или аминокислот, переносится в матрикс митохондрий и там карбоксилируется в оксалоацетат в биотинзависимой реакции, катализируемой пируваткарбоксилазой. Оксалоацетат является промежуточным метаболитом цитратного цикла. Поэтому аминокислоты, которые включаются в цитратный цикл или конвертируются в пируват, могут непосредственно превращаться в глюкозу (глюкогенные аминокислоты). Оксалоацетат, образующийся в митохондриальном матриксе, восстанавливается в малат, который может переноситься в цитоплазму с помощью специальных переносчиков.
В цитоплазме малат при участии малатдегидрогеназы вновь превращается в оксалоацетат, который в реакции, катализируемой ГТФзависимой ФЕП-карбоксикиназой, переводится в фосфоенолпируват. Последующие стадии до фруктозо-1,6-дифосфата представляют собой модификации соответствующих реакций гликолиза. При этом для образования 1,3-дифосфоглицерата дополнительно расходуется АТФ.
