
10.7. Глюконеогенез
Если получаемое с пищей количество углеводов недостаточно, необходимая концентрация глюкозы в крови может поддерживаться некоторое время за счет расщепления гликогена в печени. Если истощены и эти запасы, в печени запускается синтез глюкозы de novo - глюконеогенез. Наряду с печенью высокой глюконеогенезной активностью обладают также клетки почечных канальцев. Исходными соединениями в глюконеогенезе являются аминокислоты мышечной ткани. При длительном голодании это приводит к массивному распаду мышечного белка. Другим важным исходным веществом для синтеза глюкозы служит лактат, образующийся в эритроцитах и мышечной ткани при недостатке О2 , а также глицерин, образующийся при расщеплении жиров. Жирные кислоты не могут трансформироваться в глюкозу в организме животных. В организме коров за счет глюконеогенеза образуется до 3- 4 кг глюкозы в сутки. Наиболее важными источниками глюкозы у жвачных являются пропионат, глицерол и аминокислоты.
Многие реакции глюконеогенеза катализируются теми же ферментами, что и процессы гликолиза. Некоторые ферменты специфичны для глюконеогенеза и синтезируются только по мере необходимости под воздействием гормонов кортизола и глюкагона. На схеме представлена только эта группа ферментов (рис.10.10). В то время как гликолиз протекает в цитоплазме, глюконеогенез происходит также в митохондриях и эндоплазматическом ретикулуме .
Первые стадии реакционной цепи протекают в митохондриях. Для перевода пирувата непосредственно в фосфоенолпируват (ФЕП) недостаточно энергии расщепления АТФ. Пируват, образующийся из лактата или аминокислот, переносится в матрикс митохондрий и там карбоксилируется в оксалоацетат в биотинзависимой реакции, катализируемой пируваткарбоксилазой. Оксалоацетат является промежуточным метаболитом цитратного цикла. Поэтому аминокислоты, которые включаются в цитратный цикл или конвертируются в пируват, могут непосредственно превращаться в глюкозу (глюкогенные аминокислоты). Оксалоацетат, образующийся в митохондриальном матриксе, восстанавливается в малат, который может переноситься в цитоплазму с помощью специальных переносчиков.
В цитоплазме малат при участии малатдегидрогеназы вновь превращается в оксалоацетат, который в реакции, катализируемой ГТФзависимой ФЕП-карбоксикиназой, переводится в фосфоенолпируват. Последующие стадии до фруктозо-1,6-дифосфата представляют собой модификации соответствующих реакций гликолиза. При этом для образования 1,3-дифосфоглицерата дополнительно расходуется АТФ.
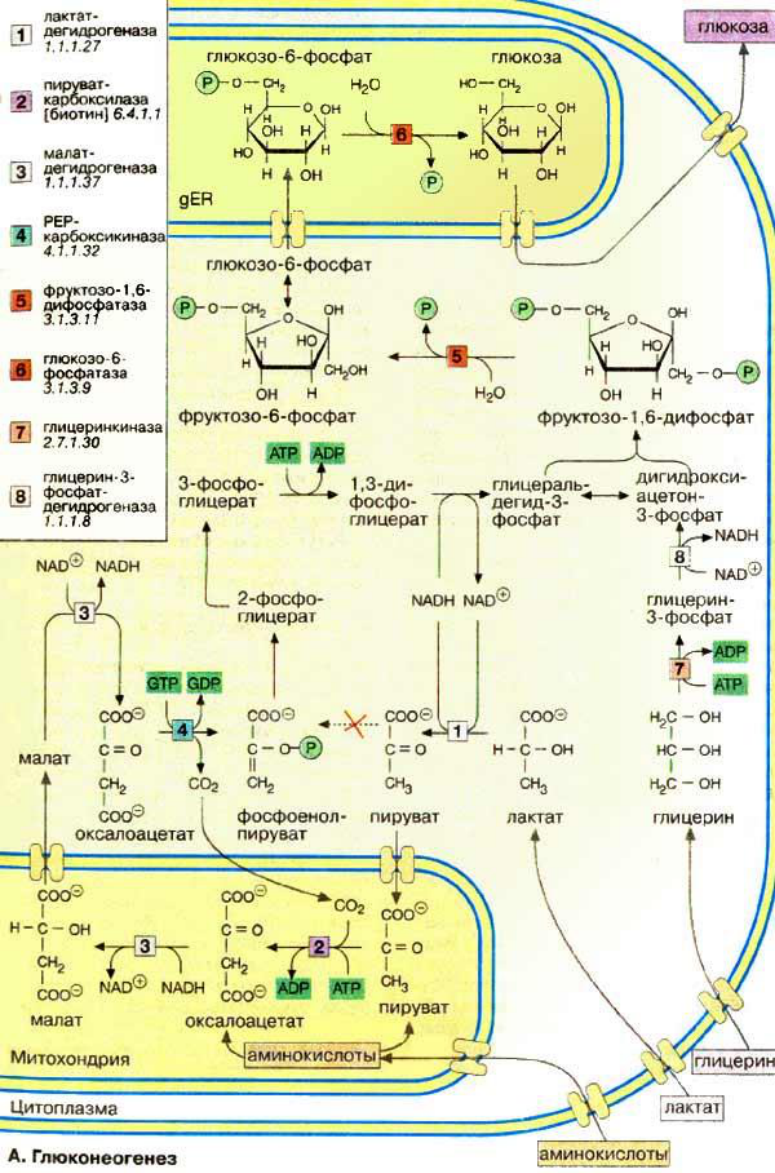
Две глюконеогенез-специфичные фосфатазы отщепляют по очереди фосфатные остатки от фруктозо-1,6-дифосфата. Промежуточной стадией является изомеризация фруктозо-6-фосфата в глюкозо-6-фосфат. Глюкозо-6-фосфатаза печени является мембранным ферментом, локализованным внутри гладкого эндоплазматического ретикулума. Перенос глюкозо-6-фосфата в эндоплазматический ретикулум и возврат образующейся глюкозы в цитоплазму осуществляется специфическими переносчиками. Из цитоплазмы глюкоза поступает в кровь.
Глицерин прежде всего фосфорилируется в положении 3. Образующийся 3-глицерофосфат окисляется НАД+ -зависимой дегидрогеназой в дигидроксиацетон-3-фосфат, который далее включается в глюконеогенез.
Образование глюкозы из пропионата . Живущие в рубце бактерии расщепляют целлюлозу с образованием свободной D-глюкозы. На этом, однако, деятельность бактерий не кончается. Они сбраживают почти всю глюкозу до лактата и ряда других продуктов, среди которых главную роль играют ацетат, пропионат и бутират. В сутки у коровы поступает из кишечника в кровь не более 100-200 граммов несброженной глюкозы. Однако корове глюкоза нужна не только как клеточное топливо для мозга и других тканей, но также и в качестве предшественника лактозы (молочного сахара) в период лактации.
Потребность в глюкозе у жвачных компенсируется за счет глюконеогенеза, протекающего в печени весьма интенсивно. Лактат, образуемый в рубце бактериями, всасывается в кровь и в печени превращается в глюкозу. Однако более существенный вклад в биосинтез глюкозы в печени делает пропионат. Путь вступления пропионата в глюконеогенез имеет следующие этапы:1) двуокись углерода «фиксируется», т.е. переходит в органическую форму в результате карбоксилирования пропионил-КоА; 2) глюконеогенезный путь, ведущий от пропионата к глюкозе, включает этап, катализируемый ферментом, содержащим в качестве простетической группы прочно связанную коферментную форму витамина В12 (рис. 10.11). В реакции, которую он катализирует, сложная смещенная алкильная группа переносится от одного атома углерода к другому, соседнему, в обмен на атом водорода, что приводит к образованию сукцинил-КоА.
