
Продукцию энергии в этой последовательности можно суммировать так:
| + | Молей | АТФ − | |
|---|---|---|---|
| 1 моль пальмитата в пальмитоил-КоА | 2 | ||
| 1 моль пальмитоил-КоА в 8 молей ацетил-КоА | 35 | ||
| 8 молей ацетил-КоА в СО2 и Н2О | 96 | ||
| Всего | 131 | 2 | |
| Чистый выход АТФ на 1 моль пальмитата | 129 |
10.5. Аминокислоты как источники энергии
Когда аминокислоты присутствуют в избытке от потребности животного или когда животному необходимо катаболизировать ткани тела, чтобы поддержать необходимые энергетические процессы, аминокислоты могут быть использованы для обеспечения энергией. Деградация аминокислот происходит во всех тканях, но, главным образом, в печени; почки также активны в этом плане. Мускульные ткани малоактивны.
Первая стадия в оксидативной деградации аминокислот – это отщепление аминогруппы с помощью одного или другого из двух главных процессов, окислительного дезаминирования и переаминирования (трансаминирования). При переаминировании аминогруппа переносится на α-углеродный атом кето-кислоты, обычно, на α-кетоглюторат, в результате образуется другая кето-кислота и глютаминовая кислота (глютамат). Реакция катализируется энзимами аминотрансферазами. Реакция для аспарагиновой кислоты (аспартата):
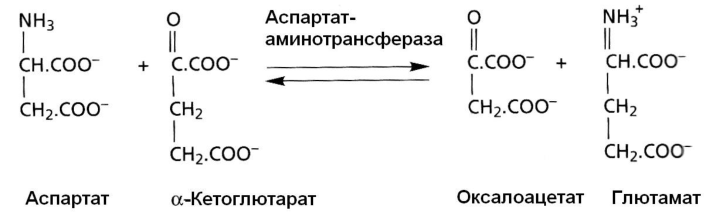
Глютамат, таким путем образованный, а также глютамат, который поступает из пищеварительного тракта и при расщеплении белков тканей, может подвергаться окислительному дезаминированию в присутствии глютаматдегидрогеназы:
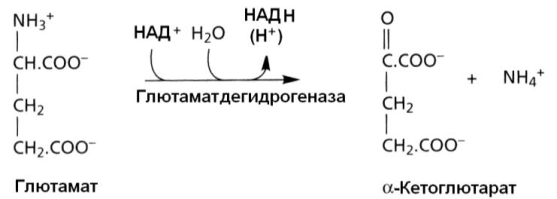
α-кетоглюторат может затем быть использован в последующем трансаминировании, и восстановленный коэнзим окисляется путем окислительного фосфорилирования.
Глютамат является единственной аминокислотой в ткани млекопитающих, который подвергается окислительному дезаминированию с высокой скоростью. Начальное трансаминирование – наиболее важный этап для использования аминокислот как источников энергии. Флавинсвязанные D-и L- амиинокислотные оксидазы, которые катализируют образование кето-кислот и аммиака, имеются, но их значение крайне слабое. Конечным продуктом деградации аминокислот является ацетилкоэнзим А, который затем проходит через цикл трикарбоновых кислот для получения энергии. Ацетил-коэнзим А может получаться напрямую (как в случае триптофана, изолейцина и лейцина), через пируват (аланин, глицин, серин, треонин, цистеин), или через ацетоацетил-КоА (фенилаланин, тирозин, лейцин, лизин и триптофан). Другие аминокислоты разрушаются с помощью реакций разной сложности, чтобы получить такие продукты, как α-кетоглютарат, оксалоацетат, фумарат и сукцинил-КоА, которые вступают в цикл трикарбоновых кислот и дают ацетил-КоА через фосфоэнолпируват.
Одним из последствий катаболизма аминокислот является продукция аммиака, который высокотоксичен. Часть его может быть использована в аминировании при синтезе аминокислот в теле. В этом случае аммиак реагирует с α-кетоглютаратом и образует глютамат, который затем используется в синтезе. Реакция является обратимой в окислительном дезаминировании, за исключением, что НАДР+ заменяют НАД+ . Большая часть аммиака экскретируется из тела в виде мочевины у млекопитающих и мочевой кислоты у птиц.
10.6. Образование мочевины и мочевой кислоты
Дезаминирование аминокислот происходит во всех органах тела, однако в наибольшей мере в печени. В большинстве других тканей аммиак используется на образование глютамина или аланина (в мускулах), прежде чем транспортироваться в печень и регенерироваться.
У млекопитающих аммиак превращается в мочевину. Это двустадийный процесс, требующий энергии в форме АТФ. Первая стадия связана с образованием карбамоилфосфата из двуокиси углерода и аммония в присутствии карбамоилфосфатсинтетазы:
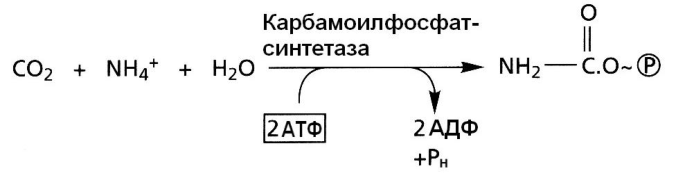
Карбамоил фосфат затем реагирует с орнитином, чтобы начать цикл реакций в образовании мочевины (рис. 10.7).
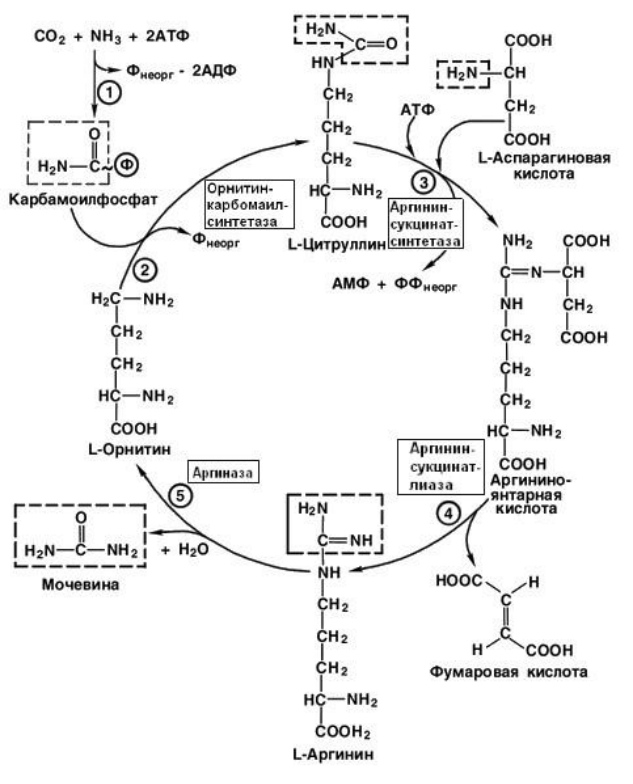
Аспартат, участвующий в цикле, получается в результате реакции глютамата с оксалоацетатом; глютамат, произведенный из α- кетоглютарата плюс аммиак, освобождается в результате дезаминирования. Оксалоацетат получается из фумаровой кислоты (фумарата), освобожденной в результате образования аргинина из аргининсукцината, который вступает в цикл трикарбоновых кислот и превращается в малат, а затем оксалоацетат. Затем наступает второй цикл, связывающий цикл мочевины и цикл трикарбоновых кислот, как показано на рисунке 10.8.
