
ша и алейронового слоя и чем ниже доля эндосперма, тем выше концентрация белка в целом зерне. Щуплое зерно с недоразвитым эндоспермом, как правило, отличается повышенной белковостью.
В самом эндосперме белки распределены также неравномерно. Концентрация их снижается по мере продвижения от субалейронового слоя к центру. Периферическая зона зерна, лежащая под алейроновым слоем, называемая субалейроновым слоем, имеет высокую концентрацию белка: у кукурузы – до 27,7%, сорго – 29 - 30%, ячменя – 21 - 24%, риса – 29%. Эта часть эндосперма полностью лишена крахмала или содержит его очень мало и характеризуется стекловидностью. Богатая крахмалом центральная часть эндосперма отличается мучнистостью и низкой концентрацией белка. Для каждого слоя эндосперма характерны свои белки. Периферические слои эндосперма пшеницы значительно богаче клейковиной (проламины + глютелины), чем центральные.
В белках алейронового слоя и зародыша существенно выше содержание лизина и меньше аминокислот, характерных для проламиновой фракции эндосперма (табл. 27.10). Помимо лизина, в этой части зерна содержится много аргинина, аспарагиновой кислоты и треонина. Глютаминовой кислоты и пролина значительно меньше, чем в эндосперме.
Таблица 27.10 – Содержание аминокислот в белках различных частей зерна, г/100 г белка
| Аминокислоты | Пшеница | Ячмень | Кукуруза | ||||||
|---|---|---|---|---|---|---|---|---|---|
| эндос- перм | заро- дыш | алей- рон | эндос- перм | заро- дыш | алей- рон | эндос- перм | заро- дыш | алей- рон | |
| Лизин | 1,7 | 8,4 | 4,6 | 3,1 | 7,3 | 4,6 | 2,0 | 6,1 | 4,4 |
| Гистидин | 2,3 | 4,0 | 4,0 | 2,1 | 3,1 | 2,4 | 2,8 | 2,9 | - |
| Аргинин | 3,5 | 16,0 | 21,2 | 4,1 | 9,7 | 6,3 | 3,8 | 9,2 | 7,0 |
| Аспараг. к-та | 3,3 | 6,5 | 8,0 | 5,0 | 9,1 | - | 6,2 | 9,2 | - |
| Треонин | 2,7 | 2,6 | 3,1 | 3,2 | 4,8 | 3,9 | 3,5 | 3,7 | 4,5 |
| Серин | 5,3 | 4,0 | 4,5 | 4,6 | 5,2 | - | 5,2 | 5,0 | - |
| Глютам. к-та | 39,3 | 8,4 | 16,4 | 27,3 | 13,5 | - | 21,3 | 13,9 | - |
| Пролин | 14,7 | 3,5 | 3,9 | 1,4 | 4,4 | - | 9,7 | 5,3 | - |
| Глицин | - | 7,3 | - | 3,3 | 6,4 | - | 3,2 | 5,5 | - |
| Аланин | 3,5 | 6,4 | 5,1 | 3,4 | 6,8 | - | 8,1 | 5,8 | - |
| Цистин | - | 1,0 | 1,8 | 4,1 | 3,5 | - | 1,8 | 0,9 | - |
| Валин | 4,3 | 4,0 | 5,4 | 4,8 | 6,1 | 5,2 | 4,7 | 4,4 | - |
| Метионин | 1,9 | 1,5 | 1,5 | 1,6 | 2,5 | 1,2 | 2,8 | 1,5 | 1,6 |
| Изолейцин | 4,1 | 2,5 | 3,1 | 3,7 | 3,8 | 4,2 | 3,8 | 3,2 | |
| Лейцин | 7,6 | 4,5 | 6,0 | 6,8 | 7,0 | 8,9 | 14,3 | 5,6 | 7,6 |
| Тирозин | 3,9 | 1,5 | 3,0 | 2,8 | 2,8 | - | 5,3 | 2,2 | - |
| Фенилаланин | 6,0 | 2,0 | 4,0 | 6,1 | 4,3 | 4,6 | 5,3 | 3,6 | - |
При производстве высокосортной муки для производства хлеба и других пищевых продуктов зародыш и алейроновый слой уходят в отруби, что в значительной мере обедняет муку и хлеб незаменимыми
аминокислотами, витаминами, микроэлементами, в конечном итоге снижая их биологическую ценность (табл. 27.11).
Таблица 27.11 – Биологическая ценность пшеницы и приготовленной из нее белой пшеничной муки 1-го сорта (средние данные для 6 сортов пшеницы, В. Г. Рядчиков, 1978)
| Белок, % | Лизин, % | Среднесуточный прирост, г | Корм/прирост, г | ЭБ(PER)* | |
|---|---|---|---|---|---|
| Пшеница | 13,6 | 0,33±0,02 | 1,84±0,12 | 6,3±0,3 | 1,17±0,1 |
| Мука | 12,2±0,5 | 0,23±0,01 | 0,52±0,04 | 19,5±0,11 | 0,42±0,02 |
| прирост | ж.м., г |
*- ЭБ(PER) – эффективность белка = потребленный белок, г
27.5. Белковые тела
В процессе развития и формирования зерна белки того или иного класса образуются в определенных клеточных органеллах или частях органелл. Запасные белки эндосперма злаков, представляющие основную массу зернового белка, локализованы в белковых телах. В зависимости от места расположения, особенностей структуры и состава белковые тела называют алейроновыми зернами, белковыми гранулами или белковыми матрицами.
Между белковыми телами разных видов растений существуют большие различия как по составу, так и по строению. Если белковые тела зерна бобовых и масличных состоят главным образом из глобулинов, то белковые тела у злаков – из проламинов и глютелинов.
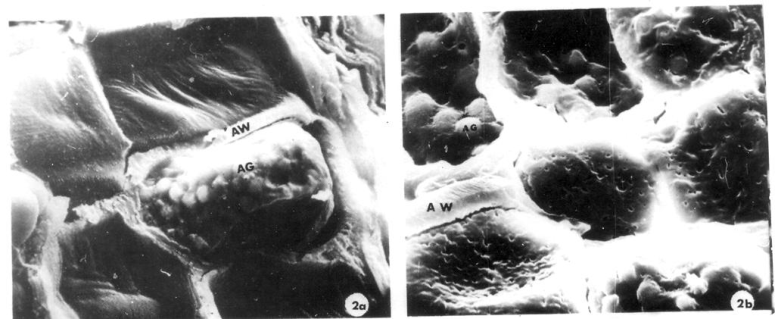
Алейроновые зерна алейроновых клеток образуют скопления, заполняющие клетку. Они как бы вдавлены в матрикс и обволакиваются им (рис. 27.6). Алейроновое зерно имеет сложное строение и состоит из кристаллоида – вещества белково-углеводного характера типа гликопротеида, глобоида (скопления калиевой и магниевой соли фитиновой кислоты) и основного белкового вещества, окружающего кристаллоид и глобоид. Выяснилось, что в алейроновых зернах ячменя фитат присутствует не в специальном месте – глобоиде, а равномерно распределен по всему белку (Romeranz, 1973), при этом фосфор фитата связан главным образом с гордеиновыми белками. Каждое алейроновое зерно окружено липопротеиновой мембраной.
Белковые тела эндосперма злаков имеют более простое строение по сравнению с алейроновыми зернами и содержат в основном запасные белки, которые у кукурузы и сорго локализованы в разветвленной белковой матрице и белковых гранулах округлой формы. Белковые гранулы субалейронового слоя и роговидного эндосперма кукурузы имеют средний диаметр 1,4-1,8 мкм, сорго – 2 мкм и плотно вдавлены в белковую матрицу. Выяснилось, что матричные белки представлены щелочерастворимой фракцией (глютелинами), а белки гранул – спирторастворимой.
Путем обработки тонкого среза эндосперма этанолом удается растворить белковые гранулы, амилазой – крахмальные зерна, при этом остается неразрушенной хорошо выраженная сетка матричного белка (рис. 27.7).

А

Б
Рисунок 27.7 - Снимок с электронного сканирующего микроскопа. А – Срез клетки эндосперма обычной кукурузы после удаления крахмальных гранул амилазой: хорошо видны зеиновые белковые тела и в виде тяжей слабый глютелиновый матрикс. Б – Срез клетки эндосперма высоколизиновой кукурузы после удаления крахмала амилазой: белковый глютелиновый матрикс более выражен, чем у обычной кукурузы. Увеличение в 1000 раз. (Wall J. S, and JW. Paulis 1975)
