телей, например воздуха, два близких цистеиновых остатка окисляются до цистина с ковалентной дисульфидной связью S-S.
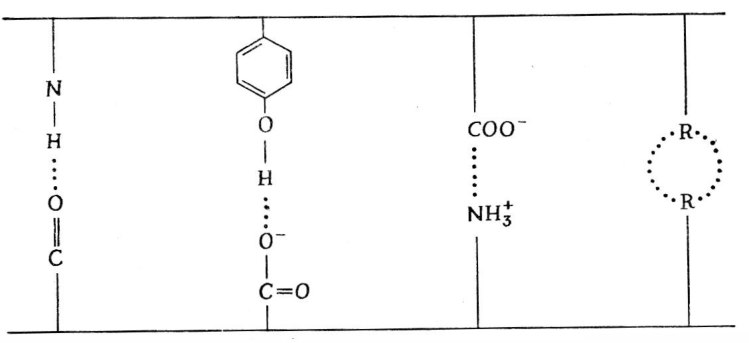
Физические силы включают электростатические взаимодействия, водородные и гидрофобные связи. К электростатическим (ионным) взаимодействиям следует отнести взаимодействие отталкивания равнозаряженных частей белковых молекул или притяжения разнозаряженных. Наиболее полярными боковыми цепями аминокислотных остатков являются кислые группы глютаминовой и аспаргиновой кислот в виде свободных карбоксильных групп, которые в нейтральных и щелочных растворах ионизируются и дают отрицательный заряд белку (рис. 6.1).
Физические связи менее прочны и могут быть разрушены специфическими растворителями, изменением температуры и pH среды, увеличением концентрации соли.
Основные аминокислоты – лизин, гистидин, аргинин имеют концевые группы, способные присоединять водородный ион в нейтральной или кислой среде, образуя положительный заряд на белковой молекуле. Высокое содержание основных и кислых аминокислот в альбуминах и глобулинах обеспечивает их гидрофильность, т.е. хорошую растворимость в водной среде.
Гидрофобные связи являются наиболее причинными для сжатия белковых молекул. Примером гидрофобных связей является образование масляных капель на поверхности воды. Длинные неполярные углеводородные цепочки масла предпочитают свое собственное окружение окружению полярной воды. Подобно этому цепи неполярных аминокислот имеют тенденцию соединяться с другими неполярными группами в молекулах белка, выталкивая из пространства между ними воду. Неполярные аминокислоты – валин, изолейцин, фенилаланин, пролин, аланин, глицин. Их боковая цепь состоит единственно из CH3 -групп.
Водородная связь Водородная связь между пептидными между боковыми группами цепями
Ионная связь
Неполярная, или гидрофобная связь
Рисунок 6.1 - Внутримолекулярные нековалентные связи, ответственные за поддержание вторичной и третичной структуры
Белки, богатые неполярными соединениями, не растворяются в полярной среде, и только органические растворители способны их диспергировать. Такие растворители, как этанол, помогают растворять проламины зерна, богатые неполярными аминокислотными остатками.
На основе этих взаимодействий структуру белковой молекулы классифицируют на первичную, вторичную, третичную и четвертичную.
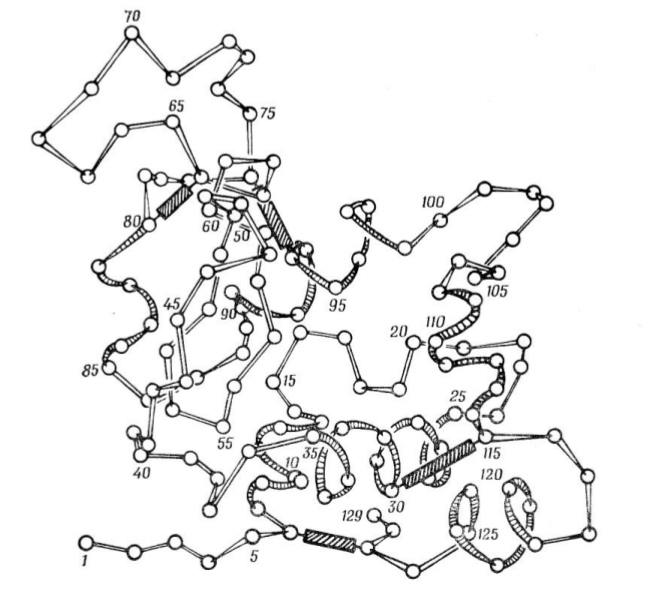
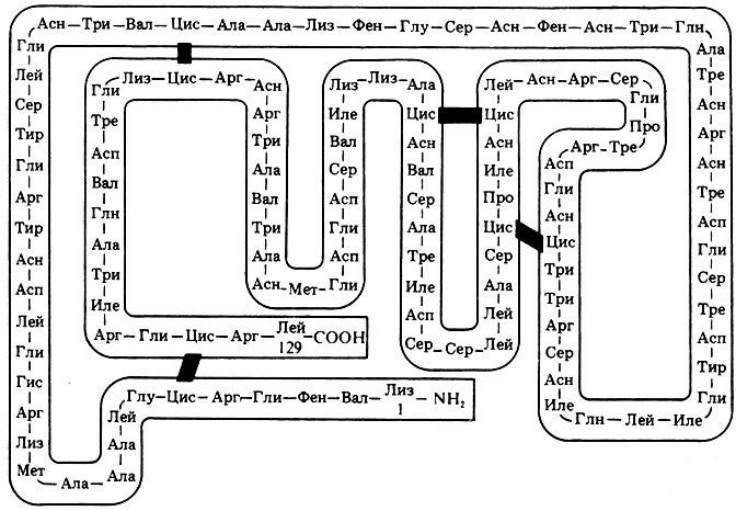
Первичная структура – определяется линейной последовательностью аминокислотных остатков, составляющих полипептидную цепь белковой молекулы. При этом основной связью является ковалентная пептидная связь. В этом случае конфигурация белковой молекулы может быть представлена длинной цепью с определенной последовательностью связанных аминокислотных остатков. На рисунке 6.2 показана первичная структура белка лизоцима состоящего из 129 аминокислотных остатков.
Вторичная структура включает 3 вида состояния белка: α- спираль, β-слой, обратный изгиб. Для глобулярных белков совсем недавно в пределах вторичной структуры обнаружена новая категория – это сегмент полипептидной цепи, напоминающий петлю, наподобие греческой буквы омега Ω. Вторичная структура определяется нековалентными связями, образующимися за счет водородных связей между
отдельными участками полипептидной цепи. В один виток α-спирали входит 3,6 аминокислотных остатков. К этому классу структурной организации белковой молекулы относят кератиновые, миозиновые, эпидерминовые, фибриновые, коллагеновые белки.
Третичную структуру связывают с упакованностью спиралевидной полипептидной цепочки до сферического состояния. На упакованность белка в значительной мере влияют ковалентные дисульфидные связи цистеиновых остатков, соединяющих между собой отдельные участки полипептидной цепи. Помимо этого на третичную структуру влияют гидрофобные взаимодействия, определяемые силами Ван дер Вальса при сближении или отталкивании неполярных частей полипептидных цепочек. В результате наблюдается разная степень взаимодействия с окружающей водой. Гидрофобные нековалентные связи играют важную роль в создании и стабилизации структуры, специфичной для каждого белка.