
Зависимость ферментативной активности от рН среды
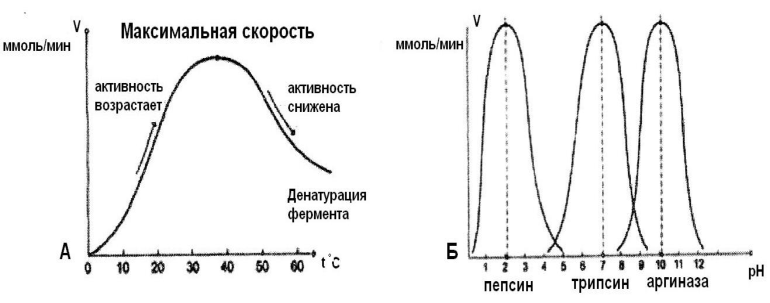
Каждый фермент имеет свой рН-оптимум, т.е. значение рН, при котором его активность максимальна. Фермент, как и любой белок, имеет в своей структуре ионогенные группы (например, карбоксильные группы или аминогруппы в боковых цепях), а от концентрации ионов водорода зависит их диссоциация и соотношение между положительно и отрицательно заряженными группами. Соотношение между этими группами определяет и пространственное строение молекулы фермента (его конформацию), а следовательно, и его активность. Большинство ферментов наиболее активны при рН=6-8. Исключения – пепсин (рНопт= 1,5-2), аргиназа (рНопт=10-11), (рис. 9.1Б).
Ферменты в отличие от небиологических катализаторов проявляют более высокую активность и свою способность ускорять реакции в очень маленьких концентрациях (например, одна молекула карбоангидразы способна расщепить 36 млн. молекул Н2СО3 ).
Центры ферментов. Молекула фермента взаимодействует с субстратом не всей своей поверхностью, а определенными участками. На поверхности фермента есть: активный центр – это участок, который взаимодействует с субстратом. Активных центров в молекуле фермента может быть несколько. Наиболее часто в состав активных центров ферментов входят функциональные группы таких аминокислот:
-
ОН - группы серина, треонина, тирозина;
-
SH - группы цистеина;
-
NH - группа гистидина;
-
СООН - группы глутамата и аспартата;
-
NH2 - группы аргинина и лизина.
В структуре активного центра выделяют: участок, который связывается с субстратом и называется контактный («якорный») участок; каталитический участок, в состав которого входят химические группы,
принимающие непосредственное участие в преобразовании субстрата:- ОН, - SH, =N, -NH3+,-СООН .
Кроме активного центра, некоторые ферменты имеют дополнительный, регуляторный, аллостерический (allos– другой, steros – пространственный) центр, с которым взаимодействуют аллостерические регуляторы (эффекторы, модуляторы). Аллостерические эффекторы могут быть позитивными (активаторами), которые повышают каталитическую активность фермента, или негативными (ингибиторами), которые ее снижают.
Активный и аллостерический центры локализуются на разных субъединицах фермента. При взаимодействии аллостерического центра с эффекторами происходят конформационные изменения активного центра фермента, что приводит к увеличению или снижению его активности. Ферменты, имеющие аллостерический центр, называются регуляторными.
Активаторы и ингибиторы ферментов
Активаторы – вещества, которые повышают скорость ферментативных реакций, увеличивают активность ферментов. Они бывают органической и неорганической природы.
Активаторы органической природы : желчные кислоты (активируют поджелудочную липазу), энтерокиназа (активирует трипсиноген), глутатион, цистеин, витамин С повышают активность оскидоредуктаз.
Активаторы неорганической природы : например, НС1 активирует пепсиноген, ионы металлов ( Na, Cl, К, Mg, Mn, Zn ) активируют очень многие ферменты. Ионы металлов: а) способствуют образованию фермент-субстратного комплекса; б) служат донорами и акцепторами электронов; в) принимают участие в образовании активного центра ферментов ( Zn – в составе карбоангидразы, Fe – в составе цитохромов, каталазы, пероксидазы); г) выступают в роли аллостерических регуляторов.
Ингибиторы – вещества, которые уменьшают активность ферментов и замедляют химические реакции. Различают обратимое и необратимое ингибирование:
если ингибитор (И) связывается с молекулой фермента (Ф) слабыми связями (Ф+И↔ФИ), то такой ингибитор легко удаляется и активность фермента восстанавливается;
если ингибитор связывается с молекулой фермента прочными ковалентными связями (Ф+И→ФИ), то наступает необратимое подавление активности фермента.
Изоферменты. Часть ферментов состоят не из одной белковой цепочки, а из нескольких субъединиц. Изоферменты – это семейство ферментов, которые катализируют одну и ту же реакцию, но отличаются по строению и физико-химическим свойствам. Например: лактатдегидрогеназа (ЛДГ) состоит из 4 субъединиц 2х-типов: субъединица Н, выделен-
ная из сердечной мышцы (heart – сердце), субъединица М, выделенная из скелетных мышц (musculus – мышца). Эти субъединицы кодируются разными генами. В разных органах имеются различные формы ЛДГ с различным набором субъединиц.
9.3. Механизм действия ферментов
Считается, что взаимодействие фермента и субстрата происходит по закону комплементарности. То есть конформация активного центра фермента должна соответствовать конфигурации субстрата, они подходят друг к другу как «ключ к замку» (рис. 9.2).
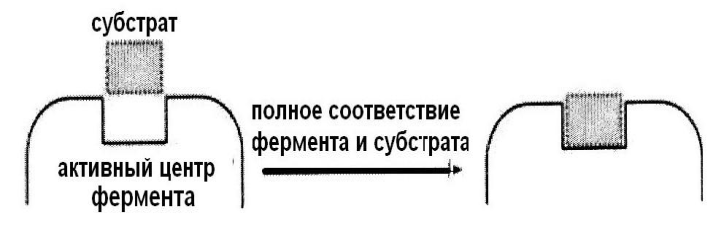
Позже была предложена теория «индуцированного» соответствия – замок формируется только в момент приближения субстрата к активному центру фермента.
Следует отметить, что размер молекулы фермента намного больше молекул субстрата. Возникает вопрос, какое это имеет значение для катализа и, зачем нужна та часть молекулы фермента, которая не входит в каталитический центр. Например, молекула химотрипсина состоит из 245 аминокислотных остатков, в то время как каталитический центр включает всего две аминокислоты – серин и гистидин (рис. 9.3).
Изучение механизма действия химотрипсина показало, что большой размер ее молекулы позволяет вызвать напряжение в структуре субстрата в результате конформационного изменения структуры самого фермента. Вследствие такой «подгонки» обеспечивается точное взаиморасположение каталитического центра фермента и катализируемых групп субстрата, т.е. индуцированное соответствие фермента субстрату. Другой смысл индуцированных конформационных изменений фермента состоит в том, чтобы обеспечить освобождение продуктов реакции из активного центра, после чего конформация молекулы возвращается в исходное состояние.
