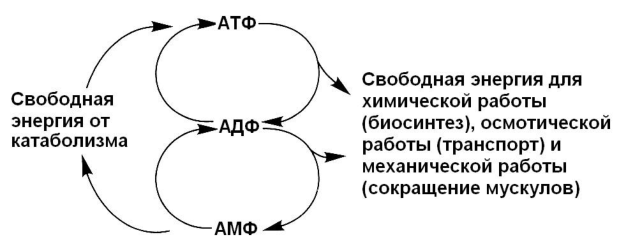
Энергия, зафиксированная в АТФ, может быть использована для механической работы, для осуществления жизненных процессов при поддержании животных и синтеза продукции – молока, мяса, яиц и др. Как сокращение, так и расслабление мускулов включают реакции, требующие энергии, которая обеспечивается за счет распада АТФ до АДФ и неорганического фосфата. Энергия, фиксированная в АТФ, может быть использована для осуществления реакций, в которых фосфатная группа отдается большому разнообразию акцепторных молекул. Среди них находится D-глюкоза:
АТФ+D-глюкоза→АДФ+D-глюкоза-фосфат
В этом пути глюкоза заряжается энергией для последующих биосинтетических реакций. В других случаях, таких как первая стадия синтеза жирных кислот, АТФ отдает энергию и разрушается до АМФ и неорганического фосфата.
Ацетат+Ко А+АТФ↔ацетил-Ко А+пирофосфат +АМФ
Роль АТФ в снабжении и использовании энергии может быть показана на рис. 10.2.
Количество энергии, которое становится доступным в результате потери каждой из двух концевых фосфатных связей АТФ, варьирует в зависимости от условий, где происходит гидролиз. Сейчас сложилось согласие, что в условиях интактной клетки она составляет около 50 кДж/моль, однако, количество изменяется в зависимости от рН, концентрации ионов Mg++ и концентрации АТФ, АДФ и фосфата. Фосфатные связи относятся к высокоэнергетическим связям, и представляются в виде ~[ Р ].
Фиксация энергии в форме АТФ является мимолетным феноменом, и энергия, произведенная в избытке от потребности, запасается в более стабильной форме в таких веществах как фосфокреатин мускулов, который образуется из креатина, когда АДФ имеется в избытке.
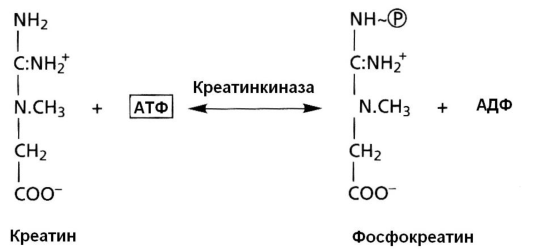
Когда АТФ не хватает, чтобы обеспечить потребность в энергии, то больше АТФ производится из фосфокреатина путем обратной реакции. Даже если материалы, подобные фосфокреатину, окажутся недостаточными, то и эти временные запасы не единственные. Большое количество энергии запасается в теле в жировых депо и небольших запасах углеводной энергии в виде гликогена. В определенных условиях и белок может быть источником энергии.
В дополнение к использованию этой запасной энергии, тело берет энергию непосредственно из питательных веществ, всосавшихся в пищеварительном тракте. Главным из них у моногастричных животных являются глюкоза, у жвачных животных летучие жирные кислоты занимают такое же место.
10.2. Глюкоза как источник энергии. Гликолиз
Глюкоза участвует в следующих реакциях:
Гликолиз. Анаэробная оксидация молекул глюкозы через 10 энзиматеческих реакций, чтобы получить две молекулы пирувата. Реакция идет в цитоплазме клеток
Микроорганизмы (бактерии, дрожжи, мицелии грибов) облигатно и факультативно живущие в анаэробных условиях, превращают пируват в молочную кислоту, как это, например, происходит в рубце жвачных.
Гликолиз до образования пирувата является общей схемой в распаде глюкозы и у животных. Однако у животных полный распад глюкозы до СО2 и Н2О происходит в присутствии кислорода, доставляемого в клетки в процессе дыхания, т.е. в аэробных условиях - в цикле трикарбоновых кислот. Гликолиз + цикл трикарбоновых кислот называют гликолизным катаболическим путем.
Гликогенолиз. Расщепление гликогена для производства глюкозы и утилизации в гликолизном катаболическом пути.
Гликогенез. Синтез гликогена из глюкозы, происходит при избытке глюкозы.
Глюконеогенез. Синтез глюкозы из неуглеводных источников (пропионата, заменимых и незаменимых аминокислот, глицерола). Име-
ет важное значение при голодании, во время стресса (роды, послеродовое состояние). Особенно важна у жвачных из-за расхода углеводов рациона в результате их ферментации в рубце на ситез летучих жирных кислот.
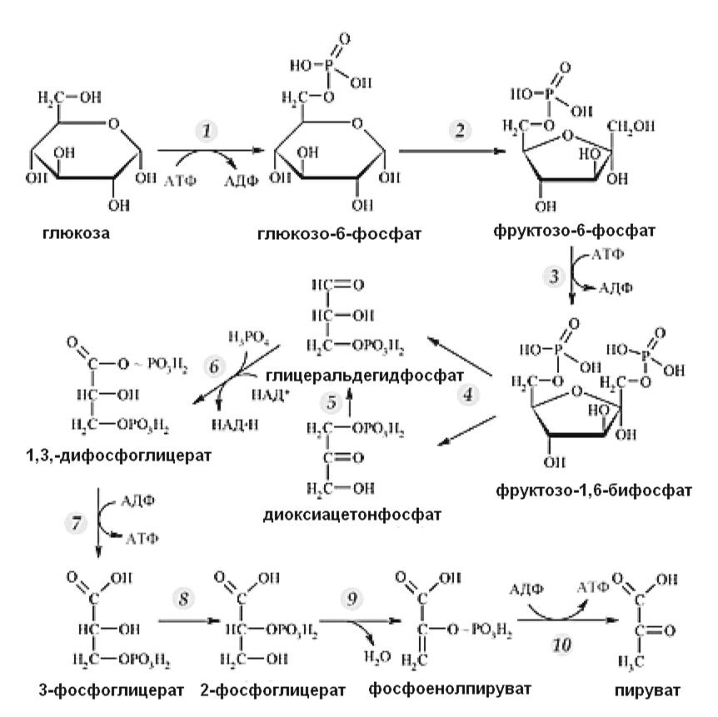
Гликолиз. Последовательные реакции гликолиза (путь Эмбден – Мейергофа) катализируются группой из 11 ферментов, локализованных в цитоплазме клеток (рис. 10.3). Различают две стадии гликолиза.
На первой стадии глюкоза дважды фосфорилируется за счет АТФ, образуя фруктозо-1,6-фосфат. Последний расщепляется с образованием двух молекул трехуглеродного соединения – глицеральдегид-3фосфата и диоксиацетонфосфата, который также превращается в глицеральдегид-3-фосфат под воздействием фермента триозофосфатизомеразы. Поэтому две молекулы глицеральдегидфосфата образуется на первой стадии гликолиза. В последующих реакциях обе половинки молекулы глюкозы претерпевают одинаковые изменения.