
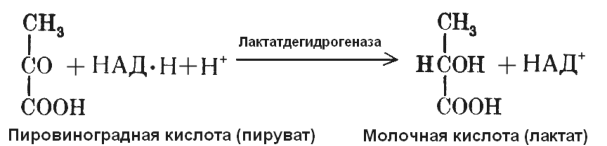
Лактат- конечный продукт гликолиза в анаэробных условиях. Когда мышечные клетки высших животных в моменты сильной мышечной нагрузки функционируют при недостатке кислорода, в них образуются большое количество лактата. Утомление обусловлено сдвигом рН в кислую сторону за счет лактата. В последующем молочная кислота из клеток поступает в кровь, затем в печень, где превращается в глюкозу. Гликолиз происходит также при бактериальном сбраживании источников глюкозы и других моносахаридов в рубце жвачных.
Цикл трикарбоновых кислот. В процессе гликолиза высвобождается лишь очень незначительная часть той химической энергии, которая потенциально может быть извлечена из молекулы глюкозы. При полном окислении глюкозы, т.е. при ее окислении до СО2 и Н2О, высвобождается намного больше энергии, чем при гликолизе.
Ацетильные группы, образовавшиеся из углеводов, жиров, аминокислот на 2-ой стадии гликолиза вступают в третью стадию, т.е. цикл трикарбоновых кислот (его называют также циклом лимонной кислоты или циклом Кребса) – общий конечный путь окислительного катаболизма всех видов клеточного топлива в аэробных условиях (рис. 10.4).
Полученная путем гликолиза пировиноградная кислота (пируват) окисляется до уксусной кислоты (ацетата) в форме ацетильного производного ацетил-КоА. Превращение пирувата в ацетил-КоА является необратимым процессом и катализируется пируватдегидрогеназным комплексом, состоящим из трех ферментов и пяти коферментов: НАД, ФАД, ТПФ, амида липоевой кислоты, СоА .
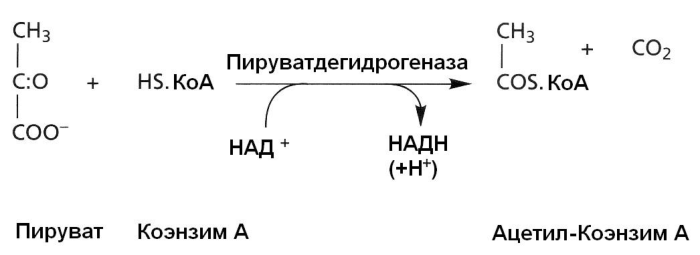
Этот процесс не является частью цикла трикарбоновых кислот, но благодаря ему углеводы через пируват включаются в цикл трикарбоновых кислот. КоА выполняет функцию переносчика ацетильных групп, точно так же, как АТФ выполняет функцию переносчика фосфатных
групп. В образовании ацетил-КоА участвуют карбоксильная группа уксусной кислоты и тиоловая группа (серусодержащая) β- меркаптоэтиламина, входящего в состав КоА.
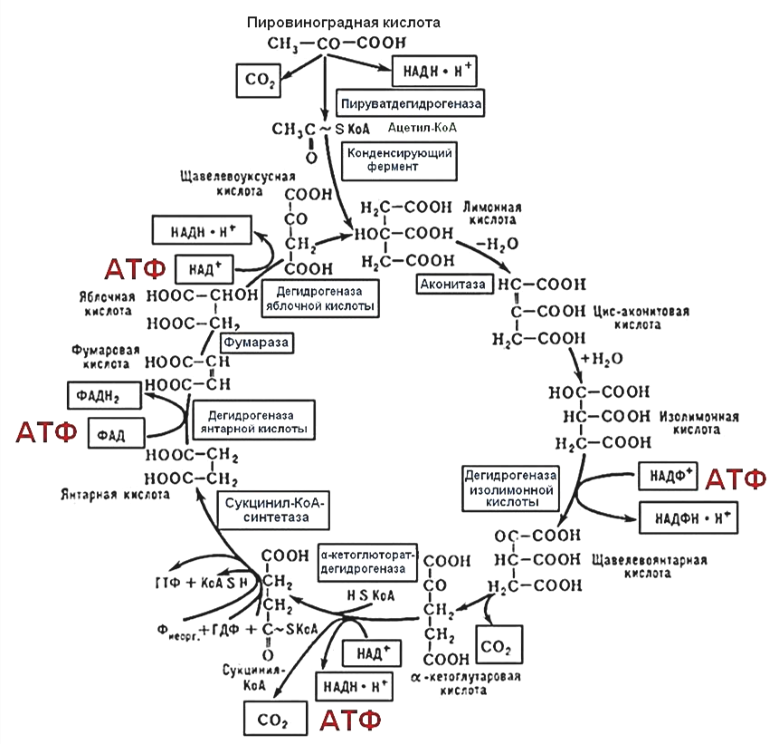
Цикл начинается с конденсации щавелевоуксусной кислоты (оксалоацетата) с ацетил-КоА с образованием лимонной кислоты (цитрата) и КоА. Реакция катализируется цитратсинтетазой. Далее цитрат изомеризуется в изолимонную кислоту (изоцитрат) через стадию образования цис-аконитовой кислоты (цис-аконитата). Изоцитрат под действием изоцитратдегидрогеназы превращается в α-кетоглютаровую кислоту (αкетоглутарат). Коферментом изоцитратдегидрогеназы является НАД. Дальше α-кетоглутарат под действием α-кетоглутаратдегидрогеназного комплекса, содержащего НАД, ФАД, КоА, ТПФ и амида липоевой кислоты в качестве коферментов, превращается в сукцинил-КоА. На этом этапе происходит окислительное декарбоксилирование. В сукцинилКоА имеется связь, богатая энергией. При гидролизе сукцинил-КоА об-
разуется около 33 кДж/моль, что сравнимо с величиной энергии, необходимой для синтеза АТФ (~30,5 кДж/моль).
Затем янтарная кислота (сукцинат) под действием сукцинатдегидрогеназы, содержащей ФАД в качестве кофермента, превращается в фумаровую кислоту (фумарат). На следующей стадии фумаровая кислота (фумарат) подвергается реакции гидратации с образованием яблочной кислоты (малата). Яблочная кислота под действием НАД-зависимой малатдегидрогеназы превращается в щавелевоуксусную кислоту. Следовательно, в цикле происходит регенерация щавелевоуксусной кислоты, что обеспечивает функционирование цикла трикарбоновых кислот.
3 НАДН и ФАДН2, образующиеся в цикле трикабоновых кислот, окисляются в дыхательной цепи (или в цепи переноса электронов). Генерирование АТФ происходит при транспорте электронов от этих переносчиков на О2. На каждую молекулу НАДН в митохондриях образуется 3 АТФ, а на 1 молекулу ФАДН2– 2 молекулы АТФ. Следовательно, в процессе окислительного фосфорилирования образуется 11 АТФ.
Кроме того, 1 моль АТФ образуется при переходе сукцинил-КоА в сукцинат. Окисление каждого моля пирувата, таким образом, дает 15 молей АТФ. Общая продукция АТФ при окислении одного моля глюкозы:
| Молей + | АТФ - | |
|---|---|---|
| 1 моль глюкозы до 2 молей пирувата | 10 | 2 |
| 2 моля пирувата до 2 молей ацетил-СоА | 6 | 0 |
| 2 моля ацетил-СоА до СО2 и Н2О | 24 | 0 |
| Всего на моль глюкозы | 38 |
Выход энергии при образовании 38 высокоэнергетических фосфатных связей может быть рассчитан как 38 × 50= 1900 кДж/моль глюкозы. Общее содержание свободной энергии глюкозы 2870 кДж/моль. Эффективность выхода энергии в виде АТФ в теле, таким образом, составляет 1900/2870= 0,66. Остальная энергия- 0,34, или 34%, теряется в виде тепла. Перенос восстановленного НАД+ , произведенного во время гликолиза, включает глицерофосфатный челнок, выход АТФ составляет только 2 моля на моль, поэтому выход АТФ при окислении каждого моля глюкозы составит 36 молей. Коэффициент эффективности образования свободной энергии будет равен: 36×50/2870=0,63. Такие расчеты признаются объективным для реакций при нормальных условиях в клетке.
Дыхательная цепь (ферменты тканевого дыхания) – это переносчики протонов и электронов от окисляемого субстрата на кислород. Молекулярный кислород непосредственно не участвует в цикле трикарбоновых кислот. Однако цикл функционирует лишь в аэробных условиях
