
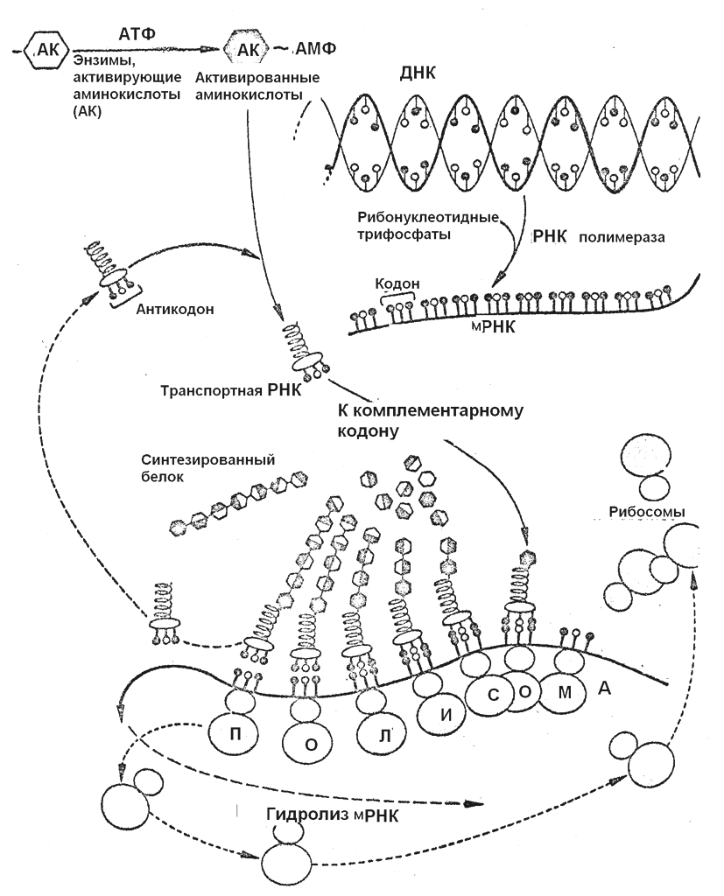
Элонгация трансляции
После инициации начинается основной этап трансляции - процесс элонгации (удлинения пептидной цепи).Он имеет циклический характер: включению каждой очередной аминокислоты соответствует один и тот же цикл событий – независимо от того, сколько аминокислотных остатков уже находится в пептидной цепи – только один (как сразу после инициации) или уже более сотни. В цикле элонгации различают 3 стадии:
-
связывание очередной аа-тРНК, чей антикодон комплементарен с кодоном мРНК в А-центре, в этом процессе участвует источник энергии ГТФ и два белковых фактора элонгации EF-1u и EF-1s (от elongation factor);
-
замыкание пептидной связи. В рибосоме оказываются друг возле друга пептидил тРНК и аа-тРНК. В результате происходит пептидилтрансферазная реакция, т.е. перенос инициирующей аминокислоты с его тРНК на новую аминокислоту с пришедшей аа-тРНК;
-
транслокация . Завершение стадии перемещения (транслокации) мРНК вместе с вновь образованной пептедил тРНК относительно рибосомы на длину одного кодона. В процессе участвует ГТФ и белковый фактор элонгации EF-2, называемый также транслоказой.
Терминация трансляция
Сигналом об окончании трансляции служит появление в рибосоме одного из «бессмысленных» кодонов мРНК – УАА, УАГ или УГА.
Этот кодон узнается уже не антикодоном аа-тРНК, а белковыми факторами терминации eRF (от eucariotic releasing factor). Фактор eRF, узнав «свой» антикодон, стимулирует гидролазную активность. В результате гидролизуется связь между тРНК и пептидом. После этого пептидная цепь, тРНК и мРНК покидают рибосому, а субъединицы последней диссоциируют друг от друга и теперь готовы начать синтез очередной пептидной цепи.
Полисомы
В приведенном описании мы рассматривали только одну рибосому. Между тем одну цепь мРНК, как правило, одновременно транслируют сразу несколько рибосом (рис. 11.8).
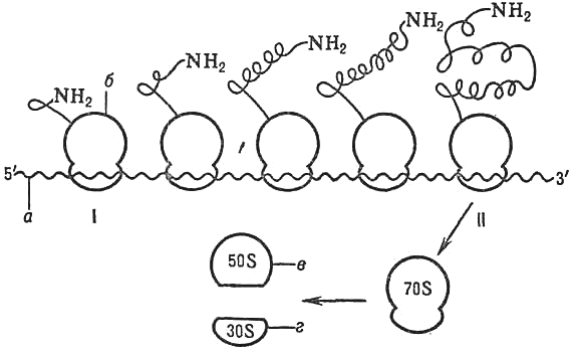
Действительно, вначале с 5'-нетранслируемым участком созревшей мРНК связывается первая рибосома (вместе с инициирующей аатРНК). Она начинает продвигаться к 3'-концу мРНК и включать аминокислоты в пептидную цепь.При ее удалении на достаточное расстояние от 5'-нетранслируемого участка последний становится доступным для следующей рибосомы, и так далее. В итоге получается полисома (или полирибосома) – комплекс рибосом, соединенных цепью мРНК и постепенно продвигающихся к ее 3'-концу.
Проверочные вопросы:
-
Строение ДНК, элементы и связи ее составляющие.
-
Какие виды РНК синтезируются в ядре на ДНК.
-
Ген, его структура, экспрессия гена, генетический код.
-
Механизм транскрипции рибонуклеиновых кислот.
-
Функции мРНК в биосинтезе белков, особенности строения мРНК.
-
Роль и структура рибосом в процессе трансляции белка.
-
Функции и строение тРНК, механизм транспорта аминокислот в процессе трансляции на мРНК.
-
Основные этапы биосинтеза белка в процессе трансляции (инициация, элонгация, терминация).
-
Факторы, определяющие стабильность мРНК.
Литература
-
Мушкамбаров Н. Н. Молекулярная биология. / Н. Н. Мушкамбаров, С. Л. Кузнецов. – М.: «Медицинское информационное агентство» 2007. – 536 с.
-
Патрушев Л. И. Экспрессия генов. / Л. И. Патрушев – М.: «Наука», 2000. – 830 с.
-
Плотников В. К. Стабильность мРНК как фактор регуляции экспрессии генов в клетках эукариот. / В. К. Плотников // Успехи современной биологии. – 1992, Т.112. – С. 186-199.
-
Рядчиков В. Г. Молекулярно-биологические механизмы адаптации белоксинтезирующей системы животных к имбалансу аминокислот. / В. Г. Рядчиков, В. К. Плотников, С. Л. Полежаев, М. О. Омаров. Политематический сетевой электронный журнал КубГАУ №86(02), февраль, 2013. Режим доступа:http;//ej.kubagro.ru/2013/02/pdf/32.pdf
-
Спирин А. С. Рибонуклеиновые кислоты как центральное звено живой материи. / А. С. Спирин // Вестник Российской академии наук. – 2003. – Т. 73. Вып. №2. – С. 117-127
-
Goldsby R. Cells and Energy 1977 P.162 2nd New York, Macmillan Publ. Co.
