
торый комплементарно взаимодействует с соответствующим кодоном в цепи мРНК.
Связывание тРНК с «своей» аминокислотой происходит с помощью фермента – специфической аминоацил-тРНК-синтетазы. Существует 20 видов таких ферментов – по одному на аминокислоту. И в каждом случае фермент имеет 2 центра узнавания - аминокислоты и любой из изоакцепторных тРНК, специфичных для данной аминокислоты. Эти ферменты сопрягают генетический код со структурой аминокислот.
Рибосомные РНК - основа формирования субъединиц рибосом. Эти субъединицы, а также входящие в них рРНК, принято обозначать по их константе седиментации.На рисунке 11.6 приведен состав цитоплазматических рибосом эукариот.
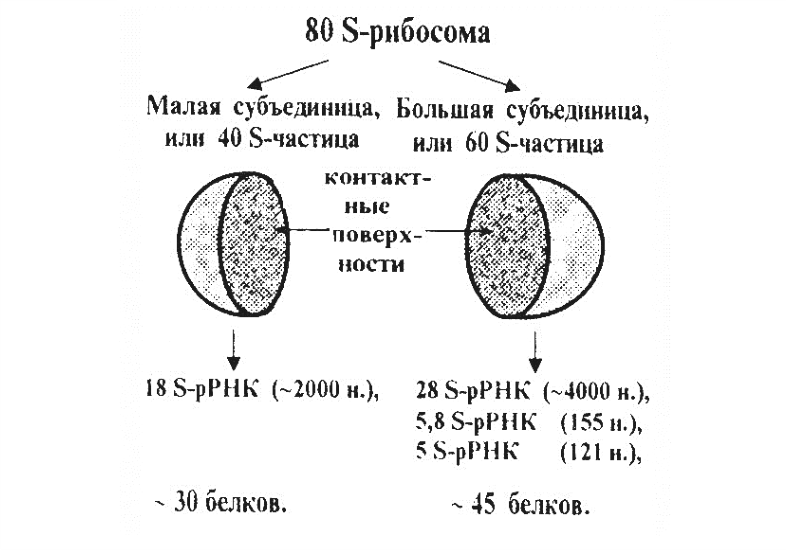
Как видно, малая субъединица содержит 1 молекулу 18 S-рРНК и около 30 молекул различных белков.Большая же субъединица включает 3 разные молекулы рРНК (одну длинную и две короткие), а также 45 белковых молекул. В результате каждая субъединица рибосомы – это свернутый рибонуклеопротеидный тяж.
11.5. Трансляция
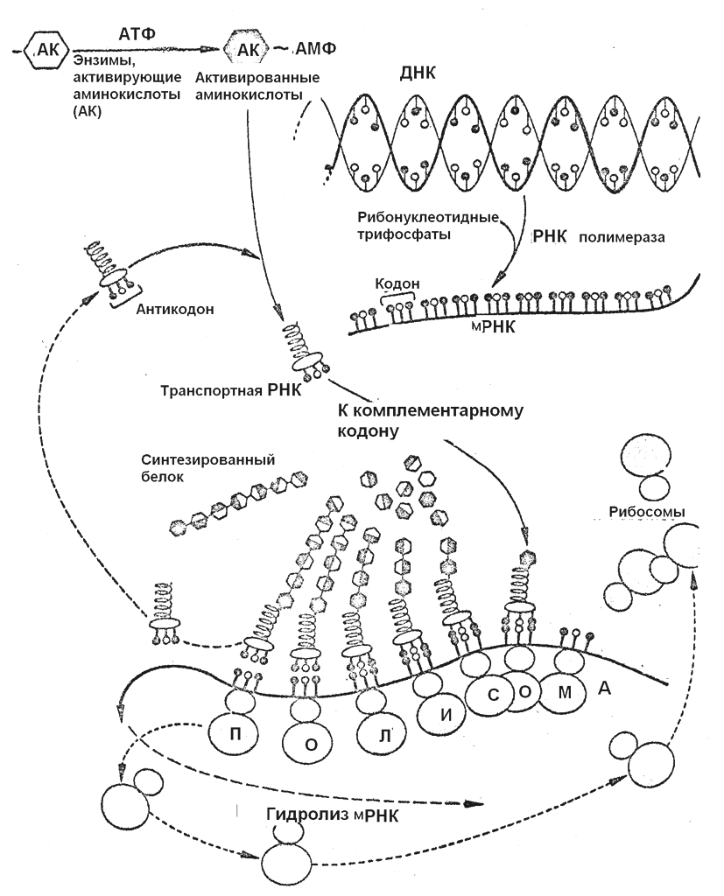
Трансляции - последовательное включение аминокислот в строящиеся пептидные цепи в соответствии с последовательностью кодонов в мРНК.
В трансляции участвуют, не свободные аминокислоты, а активированные аминоацил-тРНК(аа-тРНК): Ала-тРНКАла , Мет-тРНКМет и т. д. для всех 20 аминокислот. Иначе говоря, каждая аминокислота связана с акцепторной петлей «своей» тРНК(см. рис. 11.7).В данном процессе решается самая важная проблема трансляции - сопряжение аминокислоты с ее антикодоном.Эти процессы осуществляются с затратой энергии АТФ.
Биосинтез полипептидной цепи включает три процесса: 1) инициацию; 2) элонгацию; 3) терминацию.
Инициация. Процесс трансляции начинается со сборки активной рибосомы, что обозначается как инициация трансляции .
Эта сборка обеспечивается функциональными центрами рибосом, которые находятся на контактирующих поверхностях рибосомы:
-
центр связывания мРНК (М-центр). Он образован участком 18S-pPHK, который комплементарен 5'-нетранслируемому фрагменту мРНК; - пептидильный центр (П-центр). В начале процесса трансляции с ним связывается инициирующая аа-тРНК, обозначаемая буквой i, а именно, Мет-тРНКiМет. На последующих стадиях трансляции в П-центре находится пептидил-тРНК, содержащая уже синтезированную часть пептидной цепи;
-
аминокислотный центр(А-центр) - место связывания очередной аа-тРНК;
-
пептидилтрансферазный центр (ПТФ-центр), он катализирует перенос пептидила из состава пептидил-тРНК на поступившую в А- центр очередную аа-тРНК. При этом образуется еще одна пептидная связь и пептидил удлиняется на одну аминокислоту.
В процессе инициации происходит связывание мРНК своим 5'нетранслируемым участком с малой (40S) субъединицей рибосомы. Далее за счет комплементарного взаимодействия с инициирующим кодоном АУГ происходит связывание инициирующей аа-тРНК, т.е. МеттРНКiМет. Для инициации трансляции необходимы и другие участники – ГТФ и три белковых фактора инициации eIF-1, eIF-2, eIF-3 (от eucariotic initiation factor).
В итоге инициация трансляции в П-центре оказываются собраны вместе инициирующий кодон мРНК (АУГ) и инициирующая аа-тРНК.
Элонгация трансляции
После инициации начинается основной этап трансляции - процесс элонгации (удлинения пептидной цепи).Он имеет циклический характер: включению каждой очередной аминокислоты соответствует один и тот же цикл событий – независимо от того, сколько аминокислотных остатков уже находится в пептидной цепи – только один (как сразу после инициации) или уже более сотни. В цикле элонгации различают 3 стадии:
