
-
связывание очередной аа-тРНК, чей антикодон комплементарен с кодоном мРНК в А-центре, в этом процессе участвует источник энергии ГТФ и два белковых фактора элонгации EF-1u и EF-1s (от elongation factor);
-
замыкание пептидной связи. В рибосоме оказываются друг возле друга пептидил тРНК и аа-тРНК. В результате происходит пептидилтрансферазная реакция, т.е. перенос инициирующей аминокислоты с его тРНК на новую аминокислоту с пришедшей аа-тРНК;
-
транслокация . Завершение стадии перемещения (транслокации) мРНК вместе с вновь образованной пептедил тРНК относительно рибосомы на длину одного кодона. В процессе участвует ГТФ и белковый фактор элонгации EF-2, называемый также транслоказой.
Терминация трансляция
Сигналом об окончании трансляции служит появление в рибосоме одного из «бессмысленных» кодонов мРНК – УАА, УАГ или УГА.
Этот кодон узнается уже не антикодоном аа-тРНК, а белковыми факторами терминации eRF (от eucariotic releasing factor). Фактор eRF, узнав «свой» антикодон, стимулирует гидролазную активность. В результате гидролизуется связь между тРНК и пептидом. После этого пептидная цепь, тРНК и мРНК покидают рибосому, а субъединицы последней диссоциируют друг от друга и теперь готовы начать синтез очередной пептидной цепи.
Полисомы
В приведенном описании мы рассматривали только одну рибосому. Между тем одну цепь мРНК, как правило, одновременно транслируют сразу несколько рибосом (рис. 11.8).
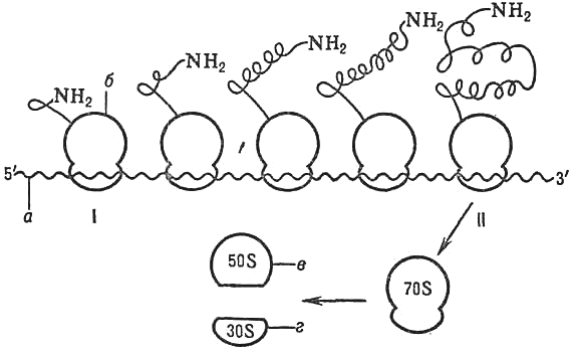
Действительно, вначале с 5'-нетранслируемым участком созревшей мРНК связывается первая рибосома (вместе с инициирующей аатРНК). Она начинает продвигаться к 3'-концу мРНК и включать аминокислоты в пептидную цепь.При ее удалении на достаточное расстояние от 5'-нетранслируемого участка последний становится доступным для следующей рибосомы, и так далее. В итоге получается полисома (или полирибосома) – комплекс рибосом, соединенных цепью мРНК и постепенно продвигающихся к ее 3'-концу.
Проверочные вопросы:
-
Строение ДНК, элементы и связи ее составляющие.
-
Какие виды РНК синтезируются в ядре на ДНК.
-
Ген, его структура, экспрессия гена, генетический код.
-
Механизм транскрипции рибонуклеиновых кислот.
-
Функции мРНК в биосинтезе белков, особенности строения мРНК.
-
Роль и структура рибосом в процессе трансляции белка.
-
Функции и строение тРНК, механизм транспорта аминокислот в процессе трансляции на мРНК.
-
Основные этапы биосинтеза белка в процессе трансляции (инициация, элонгация, терминация).
-
Факторы, определяющие стабильность мРНК.
Литература
-
Мушкамбаров Н. Н. Молекулярная биология. / Н. Н. Мушкамбаров, С. Л. Кузнецов. – М.: «Медицинское информационное агентство» 2007. – 536 с.
-
Патрушев Л. И. Экспрессия генов. / Л. И. Патрушев – М.: «Наука», 2000. – 830 с.
-
Плотников В. К. Стабильность мРНК как фактор регуляции экспрессии генов в клетках эукариот. / В. К. Плотников // Успехи современной биологии. – 1992, Т.112. – С. 186-199.
-
Рядчиков В. Г. Молекулярно-биологические механизмы адаптации белоксинтезирующей системы животных к имбалансу аминокислот. / В. Г. Рядчиков, В. К. Плотников, С. Л. Полежаев, М. О. Омаров. Политематический сетевой электронный журнал КубГАУ №86(02), февраль, 2013. Режим доступа:http;//ej.kubagro.ru/2013/02/pdf/32.pdf
-
Спирин А. С. Рибонуклеиновые кислоты как центральное звено живой материи. / А. С. Спирин // Вестник Российской академии наук. – 2003. – Т. 73. Вып. №2. – С. 117-127
-
Goldsby R. Cells and Energy 1977 P.162 2nd New York, Macmillan Publ. Co.
Глава 12. Гормональная регуляция обмена веществ и производства продукции
12.1. Регуляция потоков питательных веществ
Животные едят, чтобы получить питательные вещества на разные цели. Самый большой приоритет состоит в обеспечении их потребности на основной обмен (поддержание жизни). Молодые животные едят больше, чем им требуется на поддержание, так как они растут. Лактирующие животные тоже едят больше, чем им требуется на поддержание, поскольку им нужно производить молоко для выкармливания своего потомства. Работающие животные едят больше, чем им требуется на поддержание, чтобы, кроме того, производить работу. Большинство животных всегда будут, есть больше, чем им требуется на поддержание, так как они накапливают в теле питательные вещества про запас, ведь они никогда не знают, когда у них будет следующая еда. Скорость переваривания зависит от вида потребленного корма и вида животного. Наиболее активное всасывание питательных веществ происходит через 1-2 часа после еды. Со временем всасывание снижается, и снова появляется желание к еде.
Тело запасает всосавшиеся питательные вещества в расчете на период, когда животное не ест, т.е. на период голодания. В период голодания (даже если голодание всего несколько часов между двух дач пищи) используются резервы гликогена в качестве источника глюкозы, запасные триглицериды в качестве источников энергии, мускульные белки как источники аминокислот, на образование других, более важных белков, а так же (при необходимости) как источники углеводов для образования глюкозы.
Все процессы запасания и освобождения питательных веществ регулируются эндокринной системой животных. Гормоны и факторы роста регулируют многие из ключевых этапов метаболизма, в том числе транспорт питательных веществ в клетки, активацию процессов фосфорилирования, синтез метаболических энзимов, транспорт веществ в митохондриях, катаболические и анаболические процессы.
Такие ключевые физиологические свойства организма, как гомеостаз и гомеорезис – лежат в основе метаболической регуляции баланса между анаболическими и катаболическими процессами.
Гомеостаз . Определяется, как способность саморегуляции нормального состояния организма, поддержания концентрации глюкозы, аминокислот, электролитов, рН и др. в крови, на уровне физиологических норм. Если концентрация в крови питательных веществ повышается, как это бывает в результате всасывания после еды, то регуляторная
