
Главными лактогенными гормонами являются пролактин и эстроген, но и глюкокортикоиды и инсулин также необходимы. И наоборот, прогестерон ингибирует лактогенез, высокая концентрация прогестерона, которая бывает у большинства животных во время беременности, препятствует началу лактации (лактогенезу).
Процессы маммогенеза и лактогенеза не требуют большого количества питательных веществ в общей потребности животных, так что разделение потока питательных веществ не является особо важным в их регуляции. В период развития молочной железы и лактогенеза важно не допустить перекорма энергией и недокорма белком, чтобы не ухудшить эти процессы, по крайней мере, у жвачных. Механизм для такого действия, по-видимому, связан с лептином или соматотропной осью и временем начала полового созревания.
Было установлено, что на молочную железу в период лактации приходится до 80% или даже более потребности животного в энергии. В ранней лактации в молочной железе происходит очень интенсивный обмен веществ, питательные вещества поступают, прежде всего, в железу, даже если потребление корма недостаточное для обеспечения потребности животного в энергии. При недостатке энергии скорость этерификации жирных кислот падает ниже скорости липолиза в жировой ткани, и мобилизованные жирные кислоты служат субстратом для синтеза молочного жира или энергии для мускулов и других тканей.
Недостаток в корме белка вызывает распад (протеолиз) белка в мускулах, как следствие, мускульные аминокислоты становятся источником для образования молочного белка. Для многих лактирующих животных, особенно жвачных, глюкоза защищается от окисления или липогенеза, так как она необходима для образования лактозы. В поздней лактации, особенно, если животное беременно, приоритет молочной железы на потоки питательных веществ падает, а восстановление мускульной и жировой ткани начинает приобретать более высокий приоритет. Мускулы, в общем, имеют больше приоритета, чем жир и отложение жира происходит только тогда, когда потребность в энергии всех других функций организма удовлетворена.
Эндокринная система регулирует синтез молока (галактопоэз) и, таким образом, регулирует разделение потоков питательных веществ у лактирующих животных. Главным галактопоэзным гормоном у крупного рогатого скота является гормон роста (ГР). У нежвачных ГР также важен, однако пролактин является главным гормоном, направляющим питательные вещества в молочную железу. Положительное действие ГР может быть частично связано с ИПФР-1, который помогает создавать и поддерживать количество эпителиальных секретирующих молоко клеток в железе; в действительности, специфические для молочной железы ИПФР-1 трансгены взаимодействуют с процессом нормальной инволю-
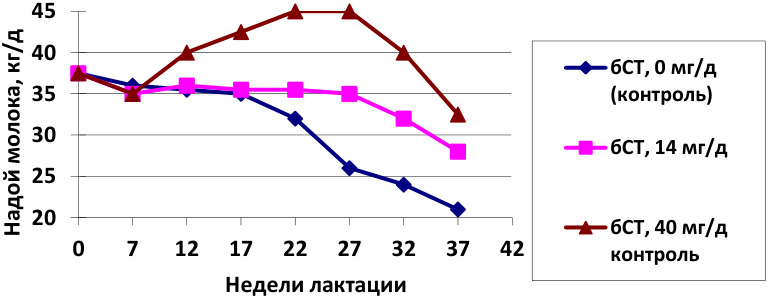
ции железы в поздней лактации. Несмотря на то, что механизм действия гормона роста еще не допонят, однако исследования по имплантации экзогенного бычьего соматотропина ясно доказывают, что он имеет мощную способность к разделению питательных веществ в направлении синтеза молока и извлечение из тела жировых отложений (рис. 12.1).
45
40
бСТ, 0 мг/д
35 (контроль)
30
бСТ, 14 мг/д
25
20
бСТ, 40 мг/д
0 7 12 17 22 27 32 37 42
контроль
Недели лактации
Надой молока, кг/д
Рисунок 12.1 – Действие экзогенного бычьего соматотропина на надой молока. Обработка начата на 12 неделе лактации и продолжалась 27 недель (Baumаn et al, 1985)
Инсулин разделяет глюкозу в направлении молочной железы у некоторых видов (крыс). Однако у жвачных, инсулин не требуется для поступления глюкозы в молочную железу, он необходим для питания глюкозой мускулов и жировой ткани. Поэтому низкая концентрация инсулина в ранней лактации благоприятствует использованию глюкозы на синтез молока, в то время как более высокая его концентрация в поздней лактации повышает приоритет других тканей.
Кортизол, по-видимому, подавляет молочную продуктивность у коров, чем повышает. Хотя стероидные гормоны яичников являются важными регуляторами лактогенеза, они имеют небольшое влияние на установление лактации, но при высоких дозах эстрогенов молочная продуктивность может подавляться.
12.5. Регуляция скорости обмена и потребления корма Тиреоидные гормоны
Тироксин (Т4) и трийодтиронин (Т3) синтезируются в щитовидной железе из тирозина. Питание слабо влияет на щитовидную железу, за исключением, когда рацион дефицитен в йоде, который является главным компонентом тиреоидных гормонов. Синтез тиреоидных гормонов находится под контролем нервной системы.
Гипоталамус производит тиреотропный рилизинг-гормон (тиреолиберин), который стимулирует освобождение тиреоидстимулирующего гормона (ТТГ) из передней доли гипофиза, который, в свою очередь, стимулирует секрецию гормонов щитовидной железы. Синтез повышается под влиянием низкой температуры. Тиреоидные гормоны регулируют скорость обмена, и являются, таким образом, важными в терморегуляции. Если не достигается потребность в энергии за счет энергии корма, то недостаток энергии под действием тироксина будет компенсироваться за счет скорости обмена веществ, приводящий к мобилизации запасов энергии из тела. Тиреоидные гормоны рассматривают как «разрешающими» действия многих других гормонов; а другими словами, без Т3 и Т4, многие другие гормоны не будут эффективно работать. Тиреоидные гормоны являются также решающими для нормального формирования костей, а дефицит Т3 связывают с острым подавлением роста. И наоборот, гипертироидизм повышает рост, однако может приводить к преждевременному слиянию ростовых пластинок и снижению размера взрослого скелета.
Лептин
Лептин – белковый гормон, производимый жировой тканью, поэтому его концентрация в крови коррелирует с упитанностью тела. Высокоэнергетические рационы так же повышают уровень циркулирующего лептина. Лептин рассматривают как гормон, вызывающий чувство насыщения, он играет центральную роль в регуляции аппетита. Это, вероятно, объясняет, почему животные могут чувствовать свой энергетический статус, и едят в соответствии с видовой границей ожирения.
Например, хроническое недоедание понижает в теле содержание жира, что происходит при низкой концентрации циркулирующего лептина, который в свою очередь изменяет чувствительность пищевого центра в гипоталамусе и повышает аппетит у животного. Как результат: худые животные имеют тенденцию больше поедать и быстрее расти (феномен компенсаторного роста), чем жирные животные. Лептин образуется и в других тканях, включая плаценту и молочную железу, он действует как сенсор жира в теле, что важно и для других функций, кроме аппетита. Касаясь значения у молодых животных, лептин повышает метаболическую активность и, таким образом, участвует в термогенезе. Кроме того, он является важным гормоном в развитии полового созревания и нормальной фертильности.
Проверочные вопросы:
-
Что такое гомеорезис?
-
Инсулин и глюкагон, их роль в обмене глюкозы.
-
Гормональная регуляция роста и отложения жира у животных.
