
клетки слизистой и поступают в кровяное русло и лимфатическую систему. Около 90% веществ всасывается в тонкой кишке и небольшое количество (10%) в желудке и толстой кишке. Всасывание происходит путем диффузии, облегченной диффузии, осмоса и активного транспорта.
Всасывание моносахаридов. Продуктами полостного и пристеночного пищеварения углеводов являются моносахара – глюкоза, фруктоза, галактоза. Фруктоза всасывается путем облегченной диффузии и поэтому может проникать через слизистую по концентрационному градиенту.
Глюкоза и галактоза всасываются в результате вторичного активного транспорта. Эти два сахара котранспортируются через апикальную (верхушечную) часть эпителиальной мембраны вместе с 2-мя молекулами Nа+ . Так как Nа+ и сахара движутся в одном и том же направлении, это является симпортом. В то время как транспорт через апикальную мембрану пассивный, движущие силы для такого движения происходят от Nа+ -К+ -АТФазы, которая активно транспортирует Nа из клетки.
Глюкоза и Nа+ могут, поэтому проходить по концентрационному градиенту из просвета кишечника в эпителиальные клетки. Попав внутрь клетки, сахара выходят (продвигаются) из клетки к базолатеральной мембране путем облегченной диффузии и входят в воротную вену.
Всасывание аминокислот, дипептидов и трипептидов. Ранее полагали, что только аминокислоты могут всасываться. Сейчас установлено, что ди- и трипептиды также активно всасываются в тонкой кишке. Некоторые аминокислоты проникают в эпителиальные клетки путем вторичной активной транспортной системы, подобно системе всасывания глюкозы и галактозы. Есть аминокислоты, которые используют натрий – независимый копереносчик, с помощью которого аминокислоты проникают вместе с ионом водорода (Н+ ), вместо Nа+ .
В этом случае Н+ перекачивается в кишечную полость в обмен на Nа+ . Nа+ затем перекачивается из клетки с помощью Nа+ -К+ -АТФазы на базолатеральную мембрану. Это создает высокий концентрационный градиент для Н+ в полости кишечника. По мере того как Н+ проникает в эпителиальные клетки слизистой, определенные аминокислоты сопереносятся вместе с ним. Пептиды всасываются посредством такого же натрий-независимого котранспортера. Будучи внутри эпителиальной клетки, пептиды гидролизуются до отдельных аминокислот, которые затем проникают путем диффузии в воротную вену.
Всасывание липидов. Поскольку липиды нерастворимы в воде, то всасывание липидов и транспорт внутри тела занимает уникальное положение в сравнении с углеводами и белками. В просвете тонкой кишки триглицериды расщепляются на жирные кислоты и моноглицериды. Желчные соли в кишечнике помогают эмульгировать липиды путем образования водорастворимых частиц (мицелл), которые помогают
миграции липидов в химусе кишечника. Так как липиды являются жирорастворимыми, то мицеллы входят в контакт с стенкой кишки, моноглицериды и свободные жирные кислоты могут проникать в эпителиальную мембрану путем простой диффузии. Желчные соли, которые помогают образовывать мицеллы продолжают формировать новые мицеллы далее по всей длине тонкого кишечника. По достижении илеума желчные соли реабсорбируются благодаря активному транспорту и вновь поступают в клетки печени. Это позволяет малому количеству желчных солей обеспечивать всасывание большого количества липидов.
Будучи внутри эпителиальных клеток, выстилающих кишку, коротко-цепочные жирные кислоты, имеющие 12 углеродов, проходят в воротную вену подобно аминокислотам и моносахарам. Остающиеся триглицериды и моноглицериды ресинтезируются в триглицериды. Эти триглицериды соединяются с холестерином и белками, образованными в шероховатом эндоплазматическом ретикулуме, чтобы сформировать капельки, называемые хиломикронами. Фосфолипиды и холестерин, ориентированы в хиломикронах так, что их гидрофобные концы обращены внутрь капелек, а их гидрофильные концы обращены к поверхности, таким образом, делая эти капельки водорастворимыми. Белки, обнаруженные на поверхности хиломикронов стабилизируют структуру.
Хиломикроны секретируются в результате процесса экзоцитоза в межклеточную жидкость ворсинок. У млекопитающих эти хиломикроны затем проникают в центральный млечный канал, который является частью лимфатической системы и переносятся к грудному каналу, где они сливаются с венозной кровью левой подключичной вены. У птиц реэтерифицированные липиды упаковываются в портомикроны. После исчезновения энтероцитов портомикроны поступают непосредственно в портальную (воротную) вену и поступают в печень.
Хотя всасывание жира внутрь эпителиальных клеток является пассивным процессом, однако, оно все же требует энергии. Желчные кислоты активно секретируются печенью, и реэтерификация моноглицеридов и жирных кислот в триглицериды требует энергии.
Всасывание иммуноглобулинов молозива у новорожденных
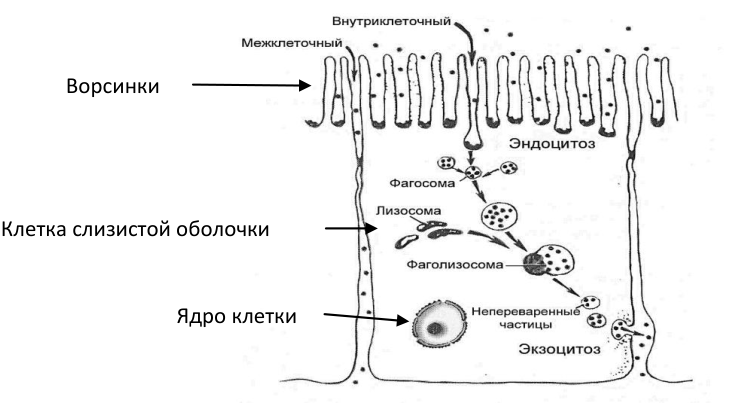
Образование антител в ответ на чужеродные вещества у новорожденных очень слабое. Однако тонкий кишечник телят, поросят, жеребят, в отличие от кишечника взрослых, способен всасывать крупные молекулы белка, в том числе, гамма-глобулины, которые являются антителами к чужеродным веществам (антигенам) – вирусам, бактериям и т.д., создавая у новорожденных пассивный иммунитет. Первая стадия всасывания молекул γ-глобулинов через кишечную стенку происходит через мембрану между микроворсинками. Когда количество этих молекул достигает критической концентрации, происходит втягивание мембраны внутрь эпителоцита и образование везикула, заполненного моле-
кулами γ-глобулинов (рис. 2.6). Передвижение везикулов, называемых фагосомами, происходит в околоядерное пространство клетки. Здесь они срастаются с лизосомами, образуя большие вакуоли, называемые фаголизосомами. В них происходит переваривание белков. Часть молекул γ-глобулинов избегает разрушения и движется к базолатеральной мембране клетки. Здесь происходит экзоцитоз, и молекулы γ- глобулинов переходят в лимфатическую систему организма новорожденных.
Ворсинки
Клетка слизистой оболочки
Ядро клетки
Рисунок 2.6 – Механизм проникновения иммуноглобулинов молозива через клетки слизистой тонкого кишечника (заимствовано у R.A.Argenzio, 2004)
Поглощающая γ-глобулины способность тонкого кишечника действует всего несколько дней после рождения, затем кишечник «запирается» чтобы не допустить попадания высокомолекулярных белков, способных вызвать аллергию.
2.4. Пищеварение в толстом отделе кишечника
Толстая кишка (intestinum crassum) относится к заднему отделу пищеварительного тракта и делится на слепую (caecum), ободочную (colon) и прямую (rectum) кишки. Объем его варьирует (по отношению к общему объему желудочно-кишечного тракта) от 11-15% у плотоядных и жвачных до 40-60% у лошадей и кроликов. У свиней он занимает промежуточное положение. У травоядных с однокамерным желудком (лошади, кролики) его можно рассматривать как отдел, аналогичный преджелудкам жвачных. Химус из подвздошной кишки поступает в слепую порциями через илеоцекальный сфинктер (лошадь, кролик) или клапан (у жвачных, свиней и собак).
Секреторная функция. Слизистая оболочка толстой кишки не имеет ворсинок, но имеет много складок и крипт, богата бокаловидны-
