
Элементарный состав молока коровы, %, мг/кг сухого вещества (Смирнова В. Н., 1999)
| Элемент, % | Количество, % |
|---|---|
| Хлор | 0,72±0,11 |
| Калий | 0,72±0,14 |
| Кальций | 1,04±0,12 |
| Фосфор | 0,38±0,10 |
| Натрий | 0,58±0,01 |
| Магний | 0,16±0,03 |
| Сера | 0,28±0,04 |
| Марганец | 19,0±2,76 |
| Селен | 0,09±0,02 |
| Железо | 23,9±4,25 |
| Кобальт | 0,10±0,01 |
| Медь | 2,62±0,32 |
| Цинк | 36,6±3,30 |
| Йод | 0,20±0,04 |
| Свинец | 1,00±0,15 |
| Молибден | 0,38±0,05 |
50% кислорода артериальной крови. По поглощению кислорода на 100 г ткани молочная железа «уступает» в 2…3 раза лишь мозгу, активному потребителю кислорода.
Подобно всем другим клеткам, синтезирующим белки, эпителиальные клетки молочной железы имеют развитый эндоплазматический ретикулум для синтеза фосфолипидов и триглицеридов. В цитозоле клеток имеет место гликолиз и синтез жирных кислот. Глюкоза является основным поставщиком энергии для нужд молочной железы, причем на энергетические нужды идет 50% всей поступающей в железу глюкозы, тогда как другие 50% используются для синтеза лактозы и глицерина жиров молока. В лактационный период потребление глюкозы увеличивается в 10 раз по сравнению с сухостойным периодом.
По современным представлениям, все белки молока можно разделить на две группы — белки, синтезирующиеся в самой молочной железе, и белки, поступающие в молоко через железу из крови, где они находятся в готовом
виде. К первой группе относят -казеин, -лактоальбумин, -лактоглобулин; на их долю приходится свыше 90% общего белка молока. Клетки молочной железы имеют все компоненты аппарата биосинтеза белков, как и в случаях синтеза простых белков в других тканях организма.
Казеин — фосфопротеин, его синтез происходит в несколько стадий. В начале синтезируется казеиноген, предшественник казеина. Доля казеина составляет около 80% всех белков молока коровы. Казеин является сложным белком, число его фракций зависит от методов фракционирования, отличающихся друг от друга аминокислотным составом, электрофоретической подвижностью и содержанием фосфора. Преобладающими фракциями являются -казеин (50…60%) и -казеин (25…35%) от общего белка. Содержание фосфора в -казеине около 1%, в -казеине — 0,1%. В молоке казеин находится в комплексе с кальцием и фосфором, что определяет высокие питательные качества казеина и молока в целом для растущего организма.
Представителями белков второй группы являются сывороточный альбумин и иммунные -глобулины (IgG, IgA, IgM), содержание которых значительно повышается в начале периода лактации (в период образования молозива). Эти белки не синтезируются железой, а поступают в молоко в готовом виде из крови. Белки — ферменты молока — имеют тканевое происхождение и поступают в молоко из клеток молочной железы (лактаза, липаза, амилаза, каталаза, фосфатазы и др.). Активность ферментов молока зависит от периода лактации. Ферментативная активность молока значительно повышается при маститах. Вероятно, это объясняется выходом ферментов из поврежденных клеток железы в молоко.
Липиды молока представлены триглицеридами (97…98%), фосфолипида-
ми и стеридами. У крупного рогатого скота половина жирных кислот, используемых клетками молочной железы для синтеза триглицеридов, синтезируется из ацетата (поступающего из рубца в результате процессов брожения клетчатки), а вторая половина поступает из крови.
Среди жирных кислот молока преобладают олеиновая и пальмитиновая. Около 10% жирных кислот являются короткоцепными. В жире молока коровы насчитывается свыше 70 различных жирных кислот (Макарова Т. Б., 2004).
Отметим, что более 90% триглицеридов и других жиров растений гидролизуются в рубце под влиянием липолитических ферментов микроорганизмов. Из преджелудков как жиры кормов, так и продукты их гидролиза, поступают в сычуг, затем в тонкий кишечник, где имеются условия для их эмульгирования. Из кишечника жирные кислоты поступают в молочную железу для синтеза триглицеридов. Синтез жирных кислот в цитозоле эпителиальных клеток включает три этапа: образование ацетил-КоА, удлинение карбоновой цепи и образование двойных связей кислот.
Жиры молока содержат кислоты с 8, 10, 12 атомами углерода, а 5…8% жирных кислот — с 4 и 6 атомами углерода, которые отсутствуют в жирах других органов животного. В молоке коровы присутствует небольшое количество жирных кислот с нечетным числом атомов углерода, предшественником для синтеза которых является, в частности, пропионат.
Жирные кислоты, синтезируемые в молочной железе, вначале являются насыщенными. Однако эпителиальные клетки железы содержат десатюразы в эндоплазматическим ретикулуме, в результате действия которых жирные кислоты приобретают двойные связи; в частности, при участии десатюра-
зы олеиновая кислота (С18:1) трансформируется из стеариновой кислоты (С18:0). Синтез триглицеридов молока происходит в эндоплазматическом ретикулуме клеток с использованием -глицерофосфата, который формируется из глюкозы или глицерина. Неприятный запах коровьего масла, в частности, обусловлен наличием в нем ненасыщенных жирных кислот.
Углеводы молока представлены в основном дисахаридом лактозой, которая придает молоку сладковатый вкус. Лактоза состоит из галактозы и глюкозы и синтезируется исключительно в молочной железе. Этот процесс, в котором главную роль играет глюкоза, включает следующие реакции:
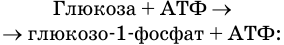
Глюкоза + АТФ
глюкозо-1-фосфат + АТФ:
Глюкозо-1-фосфат + УТФ УДФ-глюкоза + пирофосфат:
УДФ-глюкоза УДФ-галактоза:
УДФ-галактоза + глюкозо-1-фосфат лактозо-1-фосфат + УДФ:
Лактозо-1- фосфат лактоза + Н3PO4.
Процесс синтеза лактозы катализируется ферментативной системой лактозосинтетазой. Установлено также, что у крупного рогатого скота синтез лактозы имеет место в молочной железе из пропионовой кислоты. Более 25% глюкозы крови используется на синтез лактозы в молочной железе.
Образование и молокоотделение регулируется с участием гормонов. В частности, пролактин гипофиза стимулирует синтез отдельных компонентов молока, а прогестерон тормозит этот процесс, включая и синтез лактозы. С началом лактации концентрация прогестерона в крови заметно снижается, и синтез лактозы усиливается. Синтез пролактина усиливается актом сосания. Выделение молока стимули-
руется окситоцином, гормоном задней доли гипофиза, который вызывает сокращение мышечных элементов молочной железы. Акт сосания способствует усилению выделения окситоцина. Дополнительно гормоны регулируют число эпителиальных клеток молочной железы, контролируя баланс между клеточной пролиферацией и апоптозом. Взаимосвязь между поступлением крови в молочную железу и молочной
продуктивностью является постоянной. Таким образом, в молочной железе идут одновременно многочисленные и сложные биохимические процессы, которые можно суммировать как биосинтетические, фильтрационные и концентрирующие.
Отметим, что высокоудойные коровы чувствительны к болезням периода лактации, таким как молочная лихорадка (родильный парез) и кетоз.
