
КЛИНИЧЕСКАЯ БИОХИМИЯ КРУПНОГО РОГАТОГО СКОТА
БИОХИМИЯ ПИЩЕВАРИТЕЛЬНОЙ СИСТЕМЫ
Физиолого-биохимические показатели основных обменов веществ крупного рогатого скота определяются анатомо-морфологическими характеристи ками организма. В первую очередь, пищеварительная система является интегральным звеном функционирования организма скота. В частности, у коровы общая длина кишечника достигает 70 м, тогда как у лошади — 27 м. Поэтому переваримость грубых кормов у скота лучше, чем у лошади. Крупный рогатый скот имеет многокамерный желудок — рубец, сетка, книжка, сычуг (истинный железистый желудок). У коров самая большая камера желудка — рубец, емкость которого составляет 160…200 л. Величина рН содержимого рубца коровы — 6,5…7,5.
В преджелудках происходит химическая переработка питательных веществ кормов — углеводов, жиров, белков — под влиянием ферментов бактерий, грибов, инфузорий; число видов бактерий в рубце достигает 150 и до 60 разновидностей простейших. В содержимом рубца коровы бактериальная масса достигает 1,5…2,0 кг. В чем основной смысл наличия богатой мик-
рофлоры в преджелудках жвачных? Система симбиоза макроорганизм– микрофлора обеспечивает усвоение как питательных веществ кормов, так и микроорганизмов в качестве необходимых метаболитов для организма животного-хозяина.
У жвачных животных кормовые массы в преджелудках перетираются, отрыгиваются в ротовую полость, где подвергаются воздействию слюны, а затем снова поступают в преджелудки. Слюна содержит бикарбонаты, фосфаты, мочевину, натрий, калий, используемые микроорганизмами. В течение суток корова отрыгивает и вновь пережевывает до 70 кг кормовых масс. Жвачный период после приема корма составляет 30…50 мин с последующей паузой. Из рубца в последующие камеры желудка у жвачных поступают лишь хорошо измельченные и увлажненные кормовые массы. Уникальность жвачных животных состоит в том, что одну треть своей жизни они тратят на жвачный процесс.
Особенностью белкового обмена у жвачных животных является их способность синтезировать белки из небелковых веществ кормов, использование простых азотсодержащих веществ, поступающих или образующихся в преджелудках.
Многие виды микроорганизмов рубца обладают протеолитической активностью аналогично трипсину. В результате активности ферментов микроорганизмов белки кормов распадаются до пептидов или до свободных аминокислот. Часть аминокислот дезаминируется ферментами бактерий, что приводит к образованию аммиака и углеродных фрагментов. Очевидно, что у жвачных основным метаболитом азотистого обмена является аммиак, который в рубце используется в реакциях восстановительного аминирования для синтеза аминокислот и микробного белка. Аммиак также поступает в печень для синтеза мочевины. Бактерии рубца способны синтезировать практически все аминокислоты для синтеза собственных белков.
Мочевина может также поступать в рубец с кормами, слюной и из крови через стенку рубца. Под влиянием фермента уреазы бактерий мочевина гидролизуется с получением свободного аммиака, СО2 и воды. При этом в рубце аммиак служит источником синтеза как заменимых, так и незаменимых аминокислот микрофлоры, заменяя таким образом значительный процент аминокислот кормов. В сутки в рубце коровы синтезируются до 700 г полноценного бактериального белка. Следует сказать, что для обогащения рациона жвачных животных при силосовании в силосную массу добавляют небольшие количества мочевины. Однако следует помнить, что при разовом поступлении в организм кормов с содержанием мочевины в дозе 0,3 г/кг возможно острое отравление животного.
Объем сычуга у коровы составляет 10…15 л, в котором в течение суток выделяются 50…60 л сычужного сока, содержащего протеолитические ферменты (пепсин и химозин у молодых телят). В результате действия протеолитических ферментов желудочного
сока (пепсин), поджелудочной железы (трипсин, химотрипсин, карбоксипептидазы, эластаза), кишечного сока (аминопептидазы) молекулы белков корма гидролизуются до свободных аминокислот и, возможно, до мелких пептидов, которые всасываются в основном в тощей кишке.
Жиры кормовых масс могут частично перевариваться у жвачных липолитическими ферментами микрофлоры преджелудков. Для переваривания жиров и всасывания продуктов их распада в тонком кишечнике необходима желчь — секрет печеночных клеток. Печень взрослого крупного рогатого скота вырабатывает в сутки 5…7 л желчи. В составе пузырной желчи 85% воды, печеночной желчи — 98% воды. Плотное вещество желчи включает общие липиды — 0,4…0,5%, холестерин — 0,1%, жирные кислоты — 0,1%, фосфолипиды — 0,2%, иммуноглобулины, гормоны, желчные кислоты. Желчные кислоты (холевая, дезоксихолевая, литохолевая) находятся в желчи в форме парных соединений с гликоколом (NH2–CH2–CООН) или таурином (NH2–CH2–CH2–SO3H). Отдельные желчные кислоты находятся в виде натриевых солей, которые способны значительно снижать поверхностное натяжение молекул жиров, в результате чего происходит их активное эмульгирование.
Распад жировой эмульсии на мелкие частицы облегчает воздействие на них липазы поджелудочной железы. Эта липаза специфична в отношении гидролиза внешних эфирных связей молекул триглицеридов. В начале гидролиз молекулы триглицерида приводит к получению 2-моноглицерида (72%), который в результате медленной изомеризации переходит в 1-моноглицерид (6%) и только менее 22% триглицерида полностью распадаются на глицерин и свободные жирные кислоты.
Фосфолипиды (лецитин, кефалин) также подвергаются эмульгированию, а затем происходит их гидролиз с участием четырех фосфолипаз с получением, в частности, из молекулы лецитина молекулы глицерина, двух молекул жирных кислот, молекулы фосфорной кислоты и холина. Стериды кормов также в тонком кишечнике вначале эмульгируются и под влиянием холестерол-эстераз распадаются на свободные молекулы жирной кислоты и холестерина. Хорошо растворимый в воде глицерин и низкомолекулярные жирные кислоты легко всасываются в стенку кишечника. Высокомолекулярные жирные кислоты и моноглицериды образуют вначале комплексы с желчными кислотами (холеиновые комплексы) и в таком виде проникают в эпителиальные клетки кишечника. В процессе всасывания эти комплексы распадаются, и желчные кислоты повторно участвуют в транспорте жирных кислот. Таким образом, одна молекула желчной кислоты способна циркулировать в печеночно-кишечном цикле 5…6 раз в сутки.
Синтезированные в эпителиоцитах кишечника триглицериды, характерные по своему химическому составу для данного организма, образуют с белком стабильные комплексы — хиломикроны. Хиломикроны по причине сравнительно большого размера из ворсинок эпителиоцитов поступают не в кровь, а в лимфатическую систему кишечника. Через грудной проток они поступают в кровь, в печень и жировую ткань, где и гидролизуются. Жировая ткань способна депонировать значительные количества триглицеридов, обеспечивая энергетические потребности различных тканей.
В преджелудках ди- и полисахариды кормов подвергаются воздействию ферментных систем свыше ста различных микроорганизмов до молекул -глюкоз. Последние, подвергаясь различным видам брожения, образуют ряд
жирных кислот (2,5…4,5 кг в сутки). От общего их количества на долю уксусной кислоты приходится 70%, пропионовой — 18, масляной — 8%. Эти кислоты получили название летучих жирных кислот (ЛЖК). В процессах брожения также образуются газы: СО2 (60…70%), СН4 (25%).
Глюкоза вначале превращается в молочную кислоту:
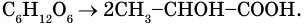
С6Н12О6 2СН3–СНОН–СООН.
Молочная кислота под влиянием ферментов микрофлоры превращается в пропионовую и уксусную кислоты:
3СН3–СНОН–СООН 2СН3–СН2– –СООН + СН3–СООН + СО2 + Н2О.
Образование масляной кислоты из глюкозы:
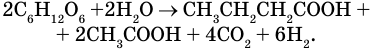
2С6Н12О6 +2Н2О СН3СН2СН2СООН +
+ 2СН3СООН + 4СО2 + 6Н2.
Уксусная кислота в большей мере образуется в рубце при расщеплении клетчатки, пропионовая кислота — при распаде крахмала, дисахаридов, а масляная кислота — при распаде белков корма. В крови жвачных животных уксусная кислота в активной форме (ацетил-КоА) составляет 90% от общего количества ЛЖК. Значение ЛЖК весьма велико для жвачных животных, так как за их счет обеспечивается до 50% энергетических потребностей организма. Обычно в рубце коровы ЛЖК присутствуют в соотношении: уксусная кислота — 65%, пропионовая — 25%, масляная — 10%.
Превращение основной массы полисахаридов в преджелудках жвачных животных в ЛЖК объясняет факт более низкой концентрации глюкозы в крови этого вида животных (50 мг%, 2,55… 3,88 ммоль/л) по сравнению с другими видами животных (лошадь — 90 мг%, 4,20…5,55 ммоль/л). Большая часть ЛЖК поступает из полости многокамерного желудка в кровь, тогда как из
