
кишечника в течение суток у коровы в кровяное русло абсорбируется не более нескольких граммов глюкозы.
Однако глюкоза нужна животному как клеточное топливо для мозга, других органов и тканей, как предшественник синтеза лактозы в период лактации. Откуда же берется глюкоза у жвачного животного, если полисахариды кормов почти полностью метаболизируют до ЛЖК?
Эта потребность покрывается за счет активного участия ЛЖК (в первую очередь из пропионата) в процессе глюконеогенеза (синтеза глюкозы из предшественников неуглеводного происхождения) в печени по схеме:
Пропионат сукцинат малат оксалоацетат глюкоза
Таким образом, у жвачных животных ЛЖК являются поставщиками необходимой организму энергии. Концентрация ЛЖК в плазме крови крупного рогатого скота составляет 1,5…3,0 мг%. Отметим, что в составе клетчатки кормов содержится негидролизуемое вещество лигнин (органический полимер), затрудняющий распад полисахарида до свободных молекул глюкозы.
Отметим, что рН содержимого рубца ниже 4 рассматривается как состояние ацидоза рубца.
АЛЬТЕРНАТИВНЫЙ ПУТЬ СИНТЕЗА ГЛЮКОЗЫ В ОРГАНИЗМЕ ЖВАЧНЫХ ЖИВОТНЫХ
Запасов свободной глюкозы и гликогена в печени и мышцах у крупного рогатого скота, как источников энергии, достаточно лишь на одни сутки. Поэтому в организме жвачных животных важнейшее значение в дополнительном пополнении количества глюкозы имеет уникальный альтернативный путь синтеза глюкозы — глюконеогенез.
Глюконеогенез — важнейший анаболический процесс для функционирования различных тканей организма. Даже в условиях, когда большая часть энергии обеспечивается за счет жиров, в организме есть определенная потребность в глюкозе. Например, глюкоза является единственным источником энергии для функционирования мышечной ткани в анаэробных условиях. Глюконеогенез является особенно важным в период интенсивной физической работы животного. Этот процесс дает возможность поддерживать должный уровень глюкозы в мозге и мышечной ткани даже после полного окисления глюкозы кормов. Молочная железа требует наличия глюкозы для синтеза лактозы молока. Источником молекул глюкозы в данном случае и является процесс глюконеогенеза.
Глюконеогенез — это синтез глюкозы из различных неуглеводных веществ. Основными субстратами глюконеогенеза у жвачных животных является молочная и пропионовая кислоты, аминокислоты, глицерол. Этот процесс активно протекает в клетках печени, корковом веществе почек, эритроцитах, семенниках, роговице глаза. Все аминокислоты, исключая лейцин и лизин, могут участвовать в глюконеогенезе. Если катаболизм какой-либо аминокислоты приводит к образованию пирувата или щавелевоуксусной кислоты, то эта кислота может вступать в процесс синтеза глюкозы.
В печени жвачных животных глюконеогенез активно протекает из пропионовой кислоты, поступающей из преджелудков. Синтез глюкозы при этом идет за счет обращений реакций гликолиза, хотя три его реакции являются необратимыми. Как известно, гликолиз — это распад глюкозы до получения лактата (в анаэробных условиях) или пирувата (в аэробных условиях). Под влиянием пируваткар-
боксилазы пируват при участии АТФ превращается в щавелевоуксусную кислоту, которая и является основой для синтеза глюкозы в обратимых реакциях гликолиза.
При должном наличии глюкозы в организме в печени и мышцах активно протекает синтез гликогена (гликогенез). Гликоген в печени составляет в норме 3…5% сырой массы железы и 0,5…2,0% в скелетных мышцах. Почему гликоген является запасной формой глюкозы? Это объясняется тем, что, вопервых, жир в мышцах не может быть использован как источник энергии так быстро, как гликоген. Во-вторых, жир не может быть использован как источник энергии в анаэробных условиях. В-третьих, жир не может быть превращен в глюкозу каким-либо путем с целью поддержания уровня глюкозы для такой ткани, как мозг.
Гликоген мышц и печени выполняет разную роль. Гликоген мышц служит резервом синтеза АТФ внутри клеток этой ткани, тогда как функция гликогена печени состоит в резерве глюкозы для поддержания ее концентрации в крови. Уровень гликогена в печени варьирует в зависимости от содержания углеводов в кормах рациона. Гликоген в мышцах используется этой тканью как источник АТФ для мышечной активности без образования свободной глюкозы как посредника, и лишь около 8% гликогена мышц превращается в свободную глюкозу.
Небольшая часть этой свободной глюкозы поступает в кровь, но большинство ее метаболизируется путем гликолиза в мышцах. Это объясняется тем, что клетки мышечной ткани имеют недостаток глюкозо-6-фосфатазы, а значит, большинство молекул свободной глюкозы, образующихся за счет гликогенолиза, катаболизируется. Поэтому гликоген мышц не является количественно важным в поддержании
уровня глюкозы в крови. Мышечный гликоген менее вариабелен, чем гликоген печени, в ответ на поступление в организм углеводов в составе кормов.
ВЗАИМОСВЯЗЬ ОБМЕНОВ УГЛЕВОДОВ, ЖИРОВ, БЕЛКОВ У ЖВАЧНЫХ ЖИВОТНЫХ
В учебных пособиях для более детального изложения вопросы обмена углеводов, жиров и белков обычно излагаются отдельно. В реальности эти основные обмены веществ в организме представляют собой единство физиолого-биохимических процессов. При этом основная стратегия всего клеточного метаболизма организма состоит в получении энергии в виде макроэргических соединений (АТФ, креатинфосфат и другие) в первую очередь из углеводов (рис. 3).
Основными субстратами энергии в организме являются углеводы, жиры, белки. При их окислении организм получает энергию в основном в виде АТФ. Общий посредник при этом — ацетилКоА, атомы углерода которого полностью окисляются в аэробных условиях до СО2. В частности, при полном окислении молекулы глюкозы в аэробных условиях клетка получает 38 молекул АТФ. При анаэробном гликолизе окисление одной молекулы глюкозы приводит к получению лишь двух молекул АТФ. Таким образом, при окислении глюкозы в аэробных условиях выход энергии в 19 раз выше, по сравнению с окислением этой молекулы в анаэробных условиях.
При голодании животного энергетические питательные вещества не поступают из кишечника в ткани и в печени имеет место минимум гликогена. В этой ситуации ткани, использующие глюкозу, являются полностью зависимыми от печеночного глюконеогенеза. Жировая ткань не может быть исполь-
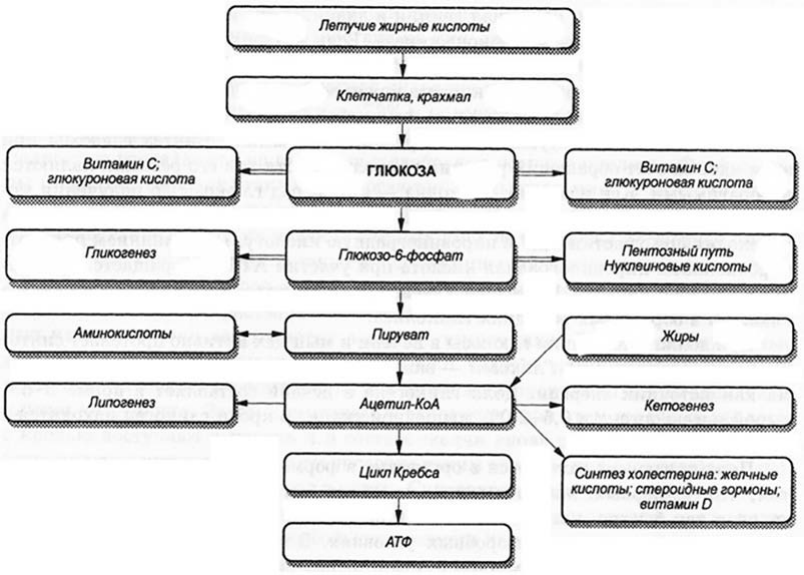
Взаимосвязь основных обменов у жвачных животных
зована на синтез глюкозы, так как ацетил-КоА, полученный при окислении жирных кислот, не может быть конвертирован в метаболиты глюконеогенеза. Поэтому белки скелетных мышц будут являться активными поставщиками углерода для синтеза глюкозы. Действительно, катаболизм подавляющего большин ства аминокислот белков мышечной ткани приводит к получению пирувата и -кетоглутарата, которые могут быть превращены в аланин и глутамин. Аланин таким образом выступает количе ственно важной глюкогенной аминокислотой в печени в условиях голодания животного.
Жировая ткань также является метаболически важной при голодании животного как источник энергии. При этом снижается инсулин-глюкагоновое отношение с резким увеличением липолиза, что приводит к подъему уров-
ня жирных кислот в крови, которые могут рассматриваться как альтернативный субстрат энергии для многих тканей. В частности, жирные кислоты обеспечивают за счет их -окисления в печени получение значительных количеств АТФ, необходимой для глюконеогенеза.
Известно, что жирные кислоты не способны поступать в мозг, а поэтому не являются источниками энергии для мозга. В этих условиях ацетил-КоА, образующийся за счет -окисления жирных кислот, в митохондриях печени трансформируется в кетоновые тела, которые легко из крови проникают через гематоэнцефалические барьеры в мозг и таким образом являются хорошим источником энергии для клеток мозга. Однако кетоновые тела не могут полностью заменить глюкозу для функций мозга.
