
Химический состав молока коровы и козы, %
| Вид животного | Вода | Жиры | Белки | Углеводы | Минералы |
|---|---|---|---|---|---|
| Корова | 87,5 | 3,6 | 3,3 | 5,0 | 0,4 |
| Коза | 87,2 | 4,1 | 3,7 | 4,2 | 0,8 |
зы в альвеолы является минимальным, а поэтому концентрация иммуноглобулинов в молозиве очень высокая (5…7 г%). У жвачных животных материнские антитела передаются новорожденным исключительно через молозиво.
Помимо иммуноглобулинов, молозиво содержит и ряд других белковых фракций неспецифической защиты организма (лизоцим, пропердин, система комплемента, лактоферрин, лактопероксидазы), которые обеспечивают бактерицидность молока. За счет большего количества кислых солей и белков молозиво имеет повышенную кислотность по сравнению с обычным молоком. Поэтому выпойка молозива новорожденным животным в первый час после рождения представляется очень важной для создания колострального или молозивного иммунитета.
Абсорбция иммуноглобулинов — наивысшая в течение первых 6 ч после рождения теленка, а затем постепенно снижается и прекращается через 2 дня. Новорожденные животные, не получившие адекватного количества молозива, растут более медленно, с признаками диареи. Для молозива характерно высокое содержание каротина: в 50…100 раз выше, чем в обычном молоке.
Молоко представляет дисперсную систему, включающую молочный сахар, белки и органические соли в коллоидном состоянии и жиры в грубодисперсном виде (жировые шарики размером 2…3 микрона), минеральные вещества, витамины. Большинство белков молока используются для роста новорожденного, тогда как лактоза и триглицериды обеспечивают энергетику организма. Белый или желтоватый
цвет молока обусловлен наличием в нем каротиноидов. Белый цвет молока обусловлен эмульсией жиров и присутствием кальциевой соли казеина, основного белка молока. Свежее молоко имеет рН = 6,6…6,9.
Содержание воды в молоке коровы составляет 87…89%; для сравнения: молоко оленя (важенка) имеет 68% воды и существенно большее содержание белков — 11,0% и жиров — 17,0% (табл. 3).
Молоко содержит ряд ионов в концентрации более 1 ммоль/л (табл. 4): моновалентные (Na+ , K+ , Cl+ , НСО3_), дивалентные (Са2+ , Mg2+ , НРО42–, SO42–). Кальций, фосфор и магний находятся в виде свободных ионов и в связи с белками и их концентрация значительно выше, чем в плазме. Вместе с лактозой моновалентные ионы являются важными осмотическими компонентами молока, играющими роль в формировании объема молока (табл. 4).
Общая концентрация фосфора в коровьем молоке равна 25 ммоль/л. Концентрация Са2+ в молоке коровы — около 4 ммоль/л, однако свободный кальций и связанный с белками составляет 30 ммоль/л. Для сравнения: общий кальций в крови равен 2,5 ммоль/л.
Большинство важных органических компонентов молока синтезируется только в эпителиальных клетках молочной железы и не находится в других тканях. Эпителиальные клетки имеют высокую плотность митохондрий, которые продуцируют АТФ для различных синтезов в клетках, транспорта компонентов молока из внутриклеточных структур в альвеолы. В период лактации молочная железа потребляет более
Элементарный состав молока коровы, %, мг/кг сухого вещества (Смирнова В. Н., 1999)
| Элемент, % | Количество, % |
|---|---|
| Хлор | 0,72±0,11 |
| Калий | 0,72±0,14 |
| Кальций | 1,04±0,12 |
| Фосфор | 0,38±0,10 |
| Натрий | 0,58±0,01 |
| Магний | 0,16±0,03 |
| Сера | 0,28±0,04 |
| Марганец | 19,0±2,76 |
| Селен | 0,09±0,02 |
| Железо | 23,9±4,25 |
| Кобальт | 0,10±0,01 |
| Медь | 2,62±0,32 |
| Цинк | 36,6±3,30 |
| Йод | 0,20±0,04 |
| Свинец | 1,00±0,15 |
| Молибден | 0,38±0,05 |
50% кислорода артериальной крови. По поглощению кислорода на 100 г ткани молочная железа «уступает» в 2…3 раза лишь мозгу, активному потребителю кислорода.
Подобно всем другим клеткам, синтезирующим белки, эпителиальные клетки молочной железы имеют развитый эндоплазматический ретикулум для синтеза фосфолипидов и триглицеридов. В цитозоле клеток имеет место гликолиз и синтез жирных кислот. Глюкоза является основным поставщиком энергии для нужд молочной железы, причем на энергетические нужды идет 50% всей поступающей в железу глюкозы, тогда как другие 50% используются для синтеза лактозы и глицерина жиров молока. В лактационный период потребление глюкозы увеличивается в 10 раз по сравнению с сухостойным периодом.
По современным представлениям, все белки молока можно разделить на две группы — белки, синтезирующиеся в самой молочной железе, и белки, поступающие в молоко через железу из крови, где они находятся в готовом
виде. К первой группе относят -казеин, -лактоальбумин, -лактоглобулин; на их долю приходится свыше 90% общего белка молока. Клетки молочной железы имеют все компоненты аппарата биосинтеза белков, как и в случаях синтеза простых белков в других тканях организма.
Казеин — фосфопротеин, его синтез происходит в несколько стадий. В начале синтезируется казеиноген, предшественник казеина. Доля казеина составляет около 80% всех белков молока коровы. Казеин является сложным белком, число его фракций зависит от методов фракционирования, отличающихся друг от друга аминокислотным составом, электрофоретической подвижностью и содержанием фосфора. Преобладающими фракциями являются -казеин (50…60%) и -казеин (25…35%) от общего белка. Содержание фосфора в -казеине около 1%, в -казеине — 0,1%. В молоке казеин находится в комплексе с кальцием и фосфором, что определяет высокие питательные качества казеина и молока в целом для растущего организма.
Представителями белков второй группы являются сывороточный альбумин и иммунные -глобулины (IgG, IgA, IgM), содержание которых значительно повышается в начале периода лактации (в период образования молозива). Эти белки не синтезируются железой, а поступают в молоко в готовом виде из крови. Белки — ферменты молока — имеют тканевое происхождение и поступают в молоко из клеток молочной железы (лактаза, липаза, амилаза, каталаза, фосфатазы и др.). Активность ферментов молока зависит от периода лактации. Ферментативная активность молока значительно повышается при маститах. Вероятно, это объясняется выходом ферментов из поврежденных клеток железы в молоко.
Липиды молока представлены триглицеридами (97…98%), фосфолипида-
ми и стеридами. У крупного рогатого скота половина жирных кислот, используемых клетками молочной железы для синтеза триглицеридов, синтезируется из ацетата (поступающего из рубца в результате процессов брожения клетчатки), а вторая половина поступает из крови.
Среди жирных кислот молока преобладают олеиновая и пальмитиновая. Около 10% жирных кислот являются короткоцепными. В жире молока коровы насчитывается свыше 70 различных жирных кислот (Макарова Т. Б., 2004).
Отметим, что более 90% триглицеридов и других жиров растений гидролизуются в рубце под влиянием липолитических ферментов микроорганизмов. Из преджелудков как жиры кормов, так и продукты их гидролиза, поступают в сычуг, затем в тонкий кишечник, где имеются условия для их эмульгирования. Из кишечника жирные кислоты поступают в молочную железу для синтеза триглицеридов. Синтез жирных кислот в цитозоле эпителиальных клеток включает три этапа: образование ацетил-КоА, удлинение карбоновой цепи и образование двойных связей кислот.
Жиры молока содержат кислоты с 8, 10, 12 атомами углерода, а 5…8% жирных кислот — с 4 и 6 атомами углерода, которые отсутствуют в жирах других органов животного. В молоке коровы присутствует небольшое количество жирных кислот с нечетным числом атомов углерода, предшественником для синтеза которых является, в частности, пропионат.
Жирные кислоты, синтезируемые в молочной железе, вначале являются насыщенными. Однако эпителиальные клетки железы содержат десатюразы в эндоплазматическим ретикулуме, в результате действия которых жирные кислоты приобретают двойные связи; в частности, при участии десатюра-
зы олеиновая кислота (С18:1) трансформируется из стеариновой кислоты (С18:0). Синтез триглицеридов молока происходит в эндоплазматическом ретикулуме клеток с использованием -глицерофосфата, который формируется из глюкозы или глицерина. Неприятный запах коровьего масла, в частности, обусловлен наличием в нем ненасыщенных жирных кислот.
Углеводы молока представлены в основном дисахаридом лактозой, которая придает молоку сладковатый вкус. Лактоза состоит из галактозы и глюкозы и синтезируется исключительно в молочной железе. Этот процесс, в котором главную роль играет глюкоза, включает следующие реакции:
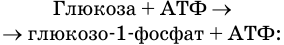
Глюкоза + АТФ
глюкозо-1-фосфат + АТФ:
Глюкозо-1-фосфат + УТФ УДФ-глюкоза + пирофосфат:
УДФ-глюкоза УДФ-галактоза:
УДФ-галактоза + глюкозо-1-фосфат лактозо-1-фосфат + УДФ:
Лактозо-1- фосфат лактоза + Н3PO4.
Процесс синтеза лактозы катализируется ферментативной системой лактозосинтетазой. Установлено также, что у крупного рогатого скота синтез лактозы имеет место в молочной железе из пропионовой кислоты. Более 25% глюкозы крови используется на синтез лактозы в молочной железе.
Образование и молокоотделение регулируется с участием гормонов. В частности, пролактин гипофиза стимулирует синтез отдельных компонентов молока, а прогестерон тормозит этот процесс, включая и синтез лактозы. С началом лактации концентрация прогестерона в крови заметно снижается, и синтез лактозы усиливается. Синтез пролактина усиливается актом сосания. Выделение молока стимули-
