
Многие виды микроорганизмов рубца обладают протеолитической активностью аналогично трипсину. В результате активности ферментов микроорганизмов белки кормов распадаются до пептидов или до свободных аминокислот. Часть аминокислот дезаминируется ферментами бактерий, что приводит к образованию аммиака и углеродных фрагментов. Очевидно, что у жвачных основным метаболитом азотистого обмена является аммиак, который в рубце используется в реакциях восстановительного аминирования для синтеза аминокислот и микробного белка. Аммиак также поступает в печень для синтеза мочевины. Бактерии рубца способны синтезировать практически все аминокислоты для синтеза собственных белков.
Мочевина может также поступать в рубец с кормами, слюной и из крови через стенку рубца. Под влиянием фермента уреазы бактерий мочевина гидролизуется с получением свободного аммиака, СО2 и воды. При этом в рубце аммиак служит источником синтеза как заменимых, так и незаменимых аминокислот микрофлоры, заменяя таким образом значительный процент аминокислот кормов. В сутки в рубце коровы синтезируются до 700 г полноценного бактериального белка. Следует сказать, что для обогащения рациона жвачных животных при силосовании в силосную массу добавляют небольшие количества мочевины. Однако следует помнить, что при разовом поступлении в организм кормов с содержанием мочевины в дозе 0,3 г/кг возможно острое отравление животного.
Объем сычуга у коровы составляет 10…15 л, в котором в течение суток выделяются 50…60 л сычужного сока, содержащего протеолитические ферменты (пепсин и химозин у молодых телят). В результате действия протеолитических ферментов желудочного
сока (пепсин), поджелудочной железы (трипсин, химотрипсин, карбоксипептидазы, эластаза), кишечного сока (аминопептидазы) молекулы белков корма гидролизуются до свободных аминокислот и, возможно, до мелких пептидов, которые всасываются в основном в тощей кишке.
Жиры кормовых масс могут частично перевариваться у жвачных липолитическими ферментами микрофлоры преджелудков. Для переваривания жиров и всасывания продуктов их распада в тонком кишечнике необходима желчь — секрет печеночных клеток. Печень взрослого крупного рогатого скота вырабатывает в сутки 5…7 л желчи. В составе пузырной желчи 85% воды, печеночной желчи — 98% воды. Плотное вещество желчи включает общие липиды — 0,4…0,5%, холестерин — 0,1%, жирные кислоты — 0,1%, фосфолипиды — 0,2%, иммуноглобулины, гормоны, желчные кислоты. Желчные кислоты (холевая, дезоксихолевая, литохолевая) находятся в желчи в форме парных соединений с гликоколом (NH2–CH2–CООН) или таурином (NH2–CH2–CH2–SO3H). Отдельные желчные кислоты находятся в виде натриевых солей, которые способны значительно снижать поверхностное натяжение молекул жиров, в результате чего происходит их активное эмульгирование.
Распад жировой эмульсии на мелкие частицы облегчает воздействие на них липазы поджелудочной железы. Эта липаза специфична в отношении гидролиза внешних эфирных связей молекул триглицеридов. В начале гидролиз молекулы триглицерида приводит к получению 2-моноглицерида (72%), который в результате медленной изомеризации переходит в 1-моноглицерид (6%) и только менее 22% триглицерида полностью распадаются на глицерин и свободные жирные кислоты.
Фосфолипиды (лецитин, кефалин) также подвергаются эмульгированию, а затем происходит их гидролиз с участием четырех фосфолипаз с получением, в частности, из молекулы лецитина молекулы глицерина, двух молекул жирных кислот, молекулы фосфорной кислоты и холина. Стериды кормов также в тонком кишечнике вначале эмульгируются и под влиянием холестерол-эстераз распадаются на свободные молекулы жирной кислоты и холестерина. Хорошо растворимый в воде глицерин и низкомолекулярные жирные кислоты легко всасываются в стенку кишечника. Высокомолекулярные жирные кислоты и моноглицериды образуют вначале комплексы с желчными кислотами (холеиновые комплексы) и в таком виде проникают в эпителиальные клетки кишечника. В процессе всасывания эти комплексы распадаются, и желчные кислоты повторно участвуют в транспорте жирных кислот. Таким образом, одна молекула желчной кислоты способна циркулировать в печеночно-кишечном цикле 5…6 раз в сутки.
Синтезированные в эпителиоцитах кишечника триглицериды, характерные по своему химическому составу для данного организма, образуют с белком стабильные комплексы — хиломикроны. Хиломикроны по причине сравнительно большого размера из ворсинок эпителиоцитов поступают не в кровь, а в лимфатическую систему кишечника. Через грудной проток они поступают в кровь, в печень и жировую ткань, где и гидролизуются. Жировая ткань способна депонировать значительные количества триглицеридов, обеспечивая энергетические потребности различных тканей.
В преджелудках ди- и полисахариды кормов подвергаются воздействию ферментных систем свыше ста различных микроорганизмов до молекул -глюкоз. Последние, подвергаясь различным видам брожения, образуют ряд
жирных кислот (2,5…4,5 кг в сутки). От общего их количества на долю уксусной кислоты приходится 70%, пропионовой — 18, масляной — 8%. Эти кислоты получили название летучих жирных кислот (ЛЖК). В процессах брожения также образуются газы: СО2 (60…70%), СН4 (25%).
Глюкоза вначале превращается в молочную кислоту:
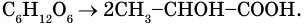
С6Н12О6 2СН3–СНОН–СООН.
Молочная кислота под влиянием ферментов микрофлоры превращается в пропионовую и уксусную кислоты:
3СН3–СНОН–СООН 2СН3–СН2– –СООН + СН3–СООН + СО2 + Н2О.
Образование масляной кислоты из глюкозы:
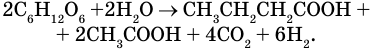
2С6Н12О6 +2Н2О СН3СН2СН2СООН +
+ 2СН3СООН + 4СО2 + 6Н2.
Уксусная кислота в большей мере образуется в рубце при расщеплении клетчатки, пропионовая кислота — при распаде крахмала, дисахаридов, а масляная кислота — при распаде белков корма. В крови жвачных животных уксусная кислота в активной форме (ацетил-КоА) составляет 90% от общего количества ЛЖК. Значение ЛЖК весьма велико для жвачных животных, так как за их счет обеспечивается до 50% энергетических потребностей организма. Обычно в рубце коровы ЛЖК присутствуют в соотношении: уксусная кислота — 65%, пропионовая — 25%, масляная — 10%.
Превращение основной массы полисахаридов в преджелудках жвачных животных в ЛЖК объясняет факт более низкой концентрации глюкозы в крови этого вида животных (50 мг%, 2,55… 3,88 ммоль/л) по сравнению с другими видами животных (лошадь — 90 мг%, 4,20…5,55 ммоль/л). Большая часть ЛЖК поступает из полости многокамерного желудка в кровь, тогда как из
кишечника в течение суток у коровы в кровяное русло абсорбируется не более нескольких граммов глюкозы.
Однако глюкоза нужна животному как клеточное топливо для мозга, других органов и тканей, как предшественник синтеза лактозы в период лактации. Откуда же берется глюкоза у жвачного животного, если полисахариды кормов почти полностью метаболизируют до ЛЖК?
Эта потребность покрывается за счет активного участия ЛЖК (в первую очередь из пропионата) в процессе глюконеогенеза (синтеза глюкозы из предшественников неуглеводного происхождения) в печени по схеме:
Пропионат сукцинат малат оксалоацетат глюкоза
Таким образом, у жвачных животных ЛЖК являются поставщиками необходимой организму энергии. Концентрация ЛЖК в плазме крови крупного рогатого скота составляет 1,5…3,0 мг%. Отметим, что в составе клетчатки кормов содержится негидролизуемое вещество лигнин (органический полимер), затрудняющий распад полисахарида до свободных молекул глюкозы.
Отметим, что рН содержимого рубца ниже 4 рассматривается как состояние ацидоза рубца.
АЛЬТЕРНАТИВНЫЙ ПУТЬ СИНТЕЗА ГЛЮКОЗЫ В ОРГАНИЗМЕ ЖВАЧНЫХ ЖИВОТНЫХ
Запасов свободной глюкозы и гликогена в печени и мышцах у крупного рогатого скота, как источников энергии, достаточно лишь на одни сутки. Поэтому в организме жвачных животных важнейшее значение в дополнительном пополнении количества глюкозы имеет уникальный альтернативный путь синтеза глюкозы — глюконеогенез.
Глюконеогенез — важнейший анаболический процесс для функционирования различных тканей организма. Даже в условиях, когда большая часть энергии обеспечивается за счет жиров, в организме есть определенная потребность в глюкозе. Например, глюкоза является единственным источником энергии для функционирования мышечной ткани в анаэробных условиях. Глюконеогенез является особенно важным в период интенсивной физической работы животного. Этот процесс дает возможность поддерживать должный уровень глюкозы в мозге и мышечной ткани даже после полного окисления глюкозы кормов. Молочная железа требует наличия глюкозы для синтеза лактозы молока. Источником молекул глюкозы в данном случае и является процесс глюконеогенеза.
Глюконеогенез — это синтез глюкозы из различных неуглеводных веществ. Основными субстратами глюконеогенеза у жвачных животных является молочная и пропионовая кислоты, аминокислоты, глицерол. Этот процесс активно протекает в клетках печени, корковом веществе почек, эритроцитах, семенниках, роговице глаза. Все аминокислоты, исключая лейцин и лизин, могут участвовать в глюконеогенезе. Если катаболизм какой-либо аминокислоты приводит к образованию пирувата или щавелевоуксусной кислоты, то эта кислота может вступать в процесс синтеза глюкозы.
В печени жвачных животных глюконеогенез активно протекает из пропионовой кислоты, поступающей из преджелудков. Синтез глюкозы при этом идет за счет обращений реакций гликолиза, хотя три его реакции являются необратимыми. Как известно, гликолиз — это распад глюкозы до получения лактата (в анаэробных условиях) или пирувата (в аэробных условиях). Под влиянием пируваткар-
