
боксилазы пируват при участии АТФ превращается в щавелевоуксусную кислоту, которая и является основой для синтеза глюкозы в обратимых реакциях гликолиза.
При должном наличии глюкозы в организме в печени и мышцах активно протекает синтез гликогена (гликогенез). Гликоген в печени составляет в норме 3…5% сырой массы железы и 0,5…2,0% в скелетных мышцах. Почему гликоген является запасной формой глюкозы? Это объясняется тем, что, вопервых, жир в мышцах не может быть использован как источник энергии так быстро, как гликоген. Во-вторых, жир не может быть использован как источник энергии в анаэробных условиях. В-третьих, жир не может быть превращен в глюкозу каким-либо путем с целью поддержания уровня глюкозы для такой ткани, как мозг.
Гликоген мышц и печени выполняет разную роль. Гликоген мышц служит резервом синтеза АТФ внутри клеток этой ткани, тогда как функция гликогена печени состоит в резерве глюкозы для поддержания ее концентрации в крови. Уровень гликогена в печени варьирует в зависимости от содержания углеводов в кормах рациона. Гликоген в мышцах используется этой тканью как источник АТФ для мышечной активности без образования свободной глюкозы как посредника, и лишь около 8% гликогена мышц превращается в свободную глюкозу.
Небольшая часть этой свободной глюкозы поступает в кровь, но большинство ее метаболизируется путем гликолиза в мышцах. Это объясняется тем, что клетки мышечной ткани имеют недостаток глюкозо-6-фосфатазы, а значит, большинство молекул свободной глюкозы, образующихся за счет гликогенолиза, катаболизируется. Поэтому гликоген мышц не является количественно важным в поддержании
уровня глюкозы в крови. Мышечный гликоген менее вариабелен, чем гликоген печени, в ответ на поступление в организм углеводов в составе кормов.
ВЗАИМОСВЯЗЬ ОБМЕНОВ УГЛЕВОДОВ, ЖИРОВ, БЕЛКОВ У ЖВАЧНЫХ ЖИВОТНЫХ
В учебных пособиях для более детального изложения вопросы обмена углеводов, жиров и белков обычно излагаются отдельно. В реальности эти основные обмены веществ в организме представляют собой единство физиолого-биохимических процессов. При этом основная стратегия всего клеточного метаболизма организма состоит в получении энергии в виде макроэргических соединений (АТФ, креатинфосфат и другие) в первую очередь из углеводов (рис. 3).
Основными субстратами энергии в организме являются углеводы, жиры, белки. При их окислении организм получает энергию в основном в виде АТФ. Общий посредник при этом — ацетилКоА, атомы углерода которого полностью окисляются в аэробных условиях до СО2. В частности, при полном окислении молекулы глюкозы в аэробных условиях клетка получает 38 молекул АТФ. При анаэробном гликолизе окисление одной молекулы глюкозы приводит к получению лишь двух молекул АТФ. Таким образом, при окислении глюкозы в аэробных условиях выход энергии в 19 раз выше, по сравнению с окислением этой молекулы в анаэробных условиях.
При голодании животного энергетические питательные вещества не поступают из кишечника в ткани и в печени имеет место минимум гликогена. В этой ситуации ткани, использующие глюкозу, являются полностью зависимыми от печеночного глюконеогенеза. Жировая ткань не может быть исполь-
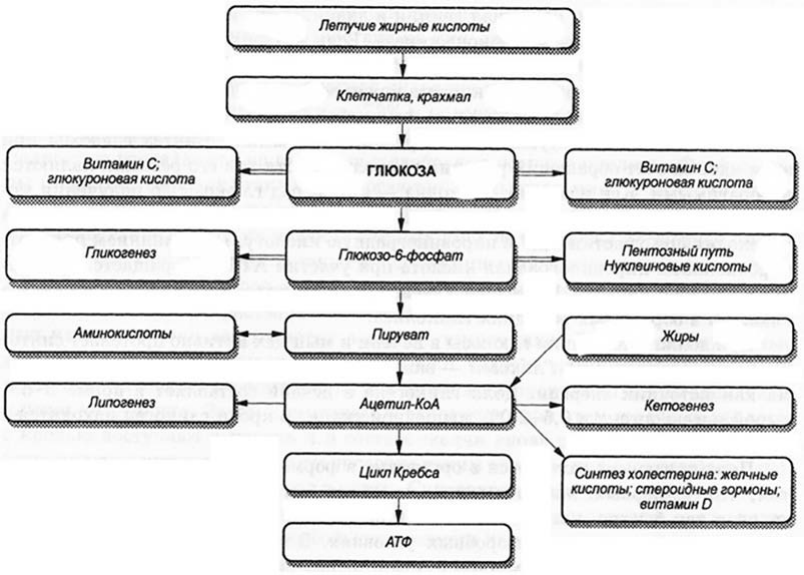
Взаимосвязь основных обменов у жвачных животных
зована на синтез глюкозы, так как ацетил-КоА, полученный при окислении жирных кислот, не может быть конвертирован в метаболиты глюконеогенеза. Поэтому белки скелетных мышц будут являться активными поставщиками углерода для синтеза глюкозы. Действительно, катаболизм подавляющего большин ства аминокислот белков мышечной ткани приводит к получению пирувата и -кетоглутарата, которые могут быть превращены в аланин и глутамин. Аланин таким образом выступает количе ственно важной глюкогенной аминокислотой в печени в условиях голодания животного.
Жировая ткань также является метаболически важной при голодании животного как источник энергии. При этом снижается инсулин-глюкагоновое отношение с резким увеличением липолиза, что приводит к подъему уров-
ня жирных кислот в крови, которые могут рассматриваться как альтернативный субстрат энергии для многих тканей. В частности, жирные кислоты обеспечивают за счет их -окисления в печени получение значительных количеств АТФ, необходимой для глюконеогенеза.
Известно, что жирные кислоты не способны поступать в мозг, а поэтому не являются источниками энергии для мозга. В этих условиях ацетил-КоА, образующийся за счет -окисления жирных кислот, в митохондриях печени трансформируется в кетоновые тела, которые легко из крови проникают через гематоэнцефалические барьеры в мозг и таким образом являются хорошим источником энергии для клеток мозга. Однако кетоновые тела не могут полностью заменить глюкозу для функций мозга.
Уровень глюкозы в крови животного поддерживается в узких границах, тогда как концентрации жирных кислот и кетоновых тел могут варьировать в значительных пределах. Постоянный уровень глюкозы в крови связан с абсолютной потребностью в ней мозга. Если концентрация глюкозы в крови упадет ниже 1,5 мМ (1 мМ = 18 мг%), то животное впадает в кому от дефицита энергии для мозга. Однако следует избегать и гипергликемии, как возможного риска развития гипергликемической комы.
Сердечная мышца использует различные субстраты для получения энергии, хотя 80…90% общей необходимой энергии поступает за счет окисления жирных кислот. Глюкоза, пируват, лактат используются сердечной мышцей в первую очередь после приема корма животным, когда уровень свободных жирных кислот в крови еще остается низким. Более предпочтительным энергетическим субстратом для сердечной мышцы является ацетоуксусная кислота. Только при длительном голодании животного кетоновые тела являются энергетически важным субстратом для сердечной мышцы.
Наряду с ферментами, гормоны играют ключевую роль в интеграции метаболизма животного. Среди них инсулин
и глюкагон занимают определяющую роль в гомеостазе глюкозы. Эти два гормона имеют противоположные биохимические эффекты. Инсулин является анаболитическим гормоном, ускоряющим синтез гликогена, триглицеридов, белков. Глюкагон — катаболический гормон, который способствует распаду белков и жиров. Глюкагон стимулирует распад гликогена и угнетает синтез этого полисахарида посредством цАМФ. Глюкагон повышает уровень этого посредника в жировых тканях, который активирует липазу при распаде триглицеридов.
Следует помнить, что именно через биохимические характеристики, отражающие течение метаболических реакций на молекулярном уровне, возможно своевременно диагностировать те или иные возможные нарушения обмена веществ в организме животного и принять необходимые меры к их устранению.
БИОХИМИЯ КРОВИ КРУПНОГО РОГАТОГО СКОТА
Биохимические показатели крови полностью отражают метаболизм белков, жиров, углеводов, витаминов, гормонов, водно-минеральный статус организма животного (табл. 1). Они позволяют интерпретировать рост и развитие
Т а б л и ц а 1
Биохимические показатели крови крупного рогатого скота (органические и минеральные компоненты)
| Показатели | Единицы измерения | Уровень |
|---|---|---|
| Эритроциты | млн/мкл | 5,0…7,5 |
| Лейкоциты | тыс./мкл | 4,5…12,0 |
| Тромбоциты | тыс./мкл | 260…700 |
| Скорость оседания эритроцитов (по А. П. Неводову) | 60 мин | 0,6…0,8 |
| Вода | % | 75…85 |
| Сухой остаток | % | 15…85 |
| Гемоглобин | г/л | 90…120 |
