
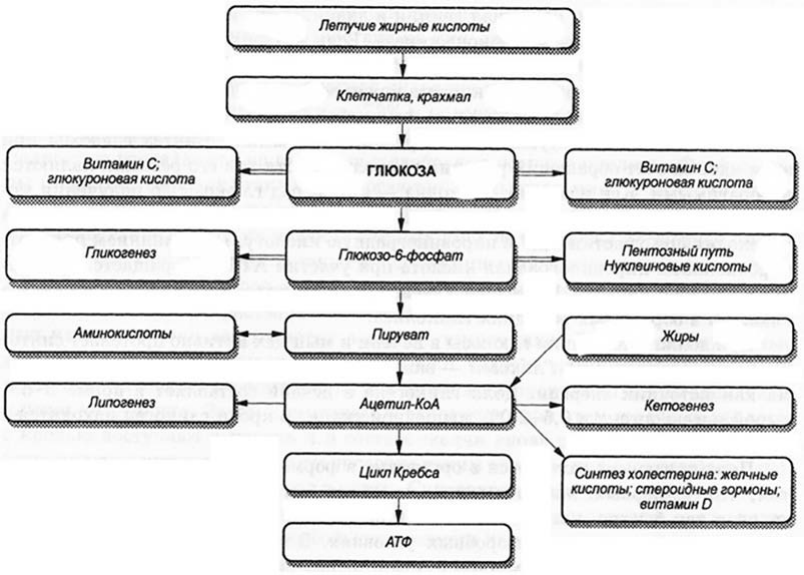
Взаимосвязь основных обменов у жвачных животных
зована на синтез глюкозы, так как ацетил-КоА, полученный при окислении жирных кислот, не может быть конвертирован в метаболиты глюконеогенеза. Поэтому белки скелетных мышц будут являться активными поставщиками углерода для синтеза глюкозы. Действительно, катаболизм подавляющего большин ства аминокислот белков мышечной ткани приводит к получению пирувата и -кетоглутарата, которые могут быть превращены в аланин и глутамин. Аланин таким образом выступает количе ственно важной глюкогенной аминокислотой в печени в условиях голодания животного.
Жировая ткань также является метаболически важной при голодании животного как источник энергии. При этом снижается инсулин-глюкагоновое отношение с резким увеличением липолиза, что приводит к подъему уров-
ня жирных кислот в крови, которые могут рассматриваться как альтернативный субстрат энергии для многих тканей. В частности, жирные кислоты обеспечивают за счет их -окисления в печени получение значительных количеств АТФ, необходимой для глюконеогенеза.
Известно, что жирные кислоты не способны поступать в мозг, а поэтому не являются источниками энергии для мозга. В этих условиях ацетил-КоА, образующийся за счет -окисления жирных кислот, в митохондриях печени трансформируется в кетоновые тела, которые легко из крови проникают через гематоэнцефалические барьеры в мозг и таким образом являются хорошим источником энергии для клеток мозга. Однако кетоновые тела не могут полностью заменить глюкозу для функций мозга.
Уровень глюкозы в крови животного поддерживается в узких границах, тогда как концентрации жирных кислот и кетоновых тел могут варьировать в значительных пределах. Постоянный уровень глюкозы в крови связан с абсолютной потребностью в ней мозга. Если концентрация глюкозы в крови упадет ниже 1,5 мМ (1 мМ = 18 мг%), то животное впадает в кому от дефицита энергии для мозга. Однако следует избегать и гипергликемии, как возможного риска развития гипергликемической комы.
Сердечная мышца использует различные субстраты для получения энергии, хотя 80…90% общей необходимой энергии поступает за счет окисления жирных кислот. Глюкоза, пируват, лактат используются сердечной мышцей в первую очередь после приема корма животным, когда уровень свободных жирных кислот в крови еще остается низким. Более предпочтительным энергетическим субстратом для сердечной мышцы является ацетоуксусная кислота. Только при длительном голодании животного кетоновые тела являются энергетически важным субстратом для сердечной мышцы.
Наряду с ферментами, гормоны играют ключевую роль в интеграции метаболизма животного. Среди них инсулин
и глюкагон занимают определяющую роль в гомеостазе глюкозы. Эти два гормона имеют противоположные биохимические эффекты. Инсулин является анаболитическим гормоном, ускоряющим синтез гликогена, триглицеридов, белков. Глюкагон — катаболический гормон, который способствует распаду белков и жиров. Глюкагон стимулирует распад гликогена и угнетает синтез этого полисахарида посредством цАМФ. Глюкагон повышает уровень этого посредника в жировых тканях, который активирует липазу при распаде триглицеридов.
Следует помнить, что именно через биохимические характеристики, отражающие течение метаболических реакций на молекулярном уровне, возможно своевременно диагностировать те или иные возможные нарушения обмена веществ в организме животного и принять необходимые меры к их устранению.
БИОХИМИЯ КРОВИ КРУПНОГО РОГАТОГО СКОТА
Биохимические показатели крови полностью отражают метаболизм белков, жиров, углеводов, витаминов, гормонов, водно-минеральный статус организма животного (табл. 1). Они позволяют интерпретировать рост и развитие
Т а б л и ц а 1
Биохимические показатели крови крупного рогатого скота (органические и минеральные компоненты)
| Показатели | Единицы измерения | Уровень |
|---|---|---|
| Эритроциты | млн/мкл | 5,0…7,5 |
| Лейкоциты | тыс./мкл | 4,5…12,0 |
| Тромбоциты | тыс./мкл | 260…700 |
| Скорость оседания эритроцитов (по А. П. Неводову) | 60 мин | 0,6…0,8 |
| Вода | % | 75…85 |
| Сухой остаток | % | 15…85 |
| Гемоглобин | г/л | 90…120 |
| Показатели | Единицы измерения | Уровень |
|---|---|---|
| Общий белок сыворотки | г/л | 60…85 |
| Альбумины | % | 35…50 |
| альфа-глобулины | % | 12…20 |
| бета-глобулины | % | 10…16 |
| гамма-глобулины | % | 25…40 |
| Остаточный азот сыворотки | ммоль/л | 14…21 |
| Глутатион крови | ммоль/л | 1,1…1,5 |
| Мочевина сыворотки | ммоль/л | 3,3…3,6 |
| Мочевая кислота | ммоль/л | 0,2…0,3 |
| Креатинин | мкмоль/л | 88…177 |
| Щелочной резерв плазмы | об.%СО2 | 46…66 |
| Глюкоза плазмы | ммоль/л | 2,50…3,88 |
| Кетоновые тела | г/л | 0,03…0,05 |
| Билирубин плазмы общий | мкмоль/л | 1,71…8,00 |
| Билирубин прямой | мкмоль/л | 0,17…3,42 |
| Холестерин плазмы общий | ммоль/л | 2,06…4,00 |
| Общие липиды | г/л | 1,0…7,2 |
| Фосфолипиды | г/л | 2,3…4,0 |
| Молочная кислота плазмы | ммоль/л | 0,55…2,22 |
| Пировиноградная кислота | ммоль/л | 0,07…0,14 |
| Лимонная кислота | ммоль/л | 0,10…0,15 |
| Каротин плазмы | мкмоль/л | 0,46…1,77 |
| Витамин А плазмы | мкмоль/л | 0,35…1,05 |
| Витамин С плазмы | мкмоль/л | 1,14…8,51 |
| АЛТ плазмы | нкат/л | 450…700 |
| АСТ плазмы | нкат/л | 934…1417 |
| Щелочная фосфотаза | ИЕ/л | 0,5…2,0 |
| Кальций сыворотки общий | ммоль/л | 2,50…3,11 |
| Фосфор сыворотки неорганический | ммоль/л | 1,45…2,10 |
| Магний сыворотки | ммоль/л | 0,5…1,5 |
| Калий | ммоль/л | 4,1…4,9 |
| Натрий | ммоль/л | 113…148 |
| Железо | мкмоль/л | 18,0…29,0 |
| Медь | мкмоль/л | 5,15…5,53 |
